


2. 空军军医大学西京医院药剂科,陕西 西安 710000;
3. 西北大学生命科学学院,陕西 西安 710000
2. Dept of Pharmacy, Xijing Hospital, Air Force Medical University, Xi'an 710000, China;
3. College of Life Sciences, Northwest University, Xi'an 710000, China
骨桥蛋白(osteopontin,OPN)是一种SPP1基因编码的多功能蛋白,广泛分布于多种细胞、组织、器官和体液中,如血管平滑肌细胞[1]、肺[2]、尿液[3]等。最初,OPN在骨肉瘤细胞中被发现,通过介导成骨细胞黏附,在骨合成和骨吸收中发挥关键作用[4]。研究表明,OPN在多种类型的胶质细胞、神经元以及免疫细胞中表达[5],证实了OPN与免疫系统、中枢神经系统(central nervous system,CNS)的功能和疾病的相关性。
传统研究认为,SPP1基因的上调通常与炎症的引发有关,主要包括感染、过敏反应、自身免疫等。OPN在不同免疫细胞类型的免疫应答中均起关键作用,这些免疫细胞在穿过血脑屏障后,可以驻留或迁移到CNS,并通过分子信号与CNS进行通信。新近研究发现,OPN在多种CNS疾病中同样发挥重要作用。例如,Xu等[6]发现在缺血性脑卒中模型小鼠的大脑中,OPN参与颅骨髓的区域特异性激活,从而促进脑膜炎症,抑制OPN表达可改善神经功能。然而,目前关于OPN的功能研究大多数均在外周免疫系统中进行,OPN在CNS中的生物学功能可能是未来的重要研究方向。因此,本综述旨在从OPN在CNS细胞中的生物学功能的角度,讨论OPN在CNS的作用及研究进展。
1 OPN的基因和蛋白结构以及生物学活性OPN最早在骨基质中作为高度磷酸化蛋白独立存在,但是T细胞、B细胞、巨噬细胞、淋巴细胞以及特异性神经元等多种细胞也均表达OPN。因此OPN可在关节、肝脏、肺部、胰腺等多种组织或器官中被检测到,并且在脑组织中表达水平最高。人类的SPP1基因位点位于4号染色体,全长7.7 kb,有7个外显子,人类OPN(hOPN)全长包括314个氨基酸残基。相比之下,鼠的SPP1基因位于5号染色体,编码区约6 kb,包括8个外显子,鼠OPN(mOPN)蛋白全长由294个氨基酸构成。hOPN的分子量约为35 ku,但由于大量糖基化、磷酸化等翻译后修饰,hOPN蛋白在聚丙烯酰胺(SDS-PAGE)凝胶上从40 ku迁移至80 ku[7]。同样,mOPN的分子量约为32 ku,但在SDS-PAGE凝胶也表现在40~80 ku。
事实上,在SDS-PAGE凝胶上所观察到的表观分子量的变化体现了翻译后修饰的类型和程度。OPN异构体可分为选择性剪接异构体与选择性翻译异构体。剪接异构体被称为OPNa、OPNb以及OPNc,OPNa包含2~7外显子,包括全序列蛋白编码区。OPNb和OPNc则分别缺少外显子5和4。所有人类选择性剪接异构体都保留了蛋白质分泌的信号序列和其他关键的OPN结构域和位点,如钙结合结构域、肝素结合结构域、凝血酶和基质金属蛋白酶(matrix metalloproteinase,MMP)的切割位点,以及具有SVVYGLR和精氨酸-甘氨酸-天冬氨酸(arginine- glycine- aspatic acid,RGD)氨基酸序列的结构域。
人和鼠的OPN都含有经典的RGD结构域,结合αvβ1、αvβ3、αvβ5、αvβ6、α5β1和α8β1整合素以及CD44变异体(CD44V)。另外一个整合素结合基序是用于hOPN的SVVYGLR168,或用于mOPN的SLAYGLR153。7-氨基酸基序位于RGD的下游,被称为OPN的“隐表位”,因为它们在hOPN的R168和S169残基之间,以及mOPN的R153和S154残基之间的凝血酶裂解时暴露[8]。通常在凝血酶裂解下产生2个OPN片段,分别为N端和C端OPN[9]。N端片段主要与整合素相互作用,而C端片段则以RGD独立的方式与CD44相互作用[10]。除凝血酶外,OPN也被MMP-3和MMP-7在hOPN的G166和L167残基之间以及mOPN的G151和L152之间进行切割[11],这些残基位于SVVYGLR和SLAYGLR的隐表位内。MMP切割破坏了隐表位,阻碍了α5β1与RGD的结合,但不影响αv整合素与RGD的结合能力[8]。除此之外,OPN中还存在其他具有生物学功能的结构域,如钙结合结构域、肝素结合域等。
OPN存在不同的翻译异构体,并可被分为两种不同亚型:胞内型OPN(iOPN),产生自SPP1替代除信号序列以外的翻译起始位置,阻止OPN分泌;分泌性OPN(sOPN),产生自包括信号序列在内的完整转录本。不同的亚细胞定位意味着iOPN和sOPN可能具有不同的磷酸化和糖基化状态。
OPN在CNS中的多重生物学活性体现在多种方面[12]。例如:①神经保护和修复:OPN能促进神经元存活和轴突生长,从而在神经损伤后的修复过程中起关键作用。②调节炎症反应:在CNS中,OPN可以调节免疫细胞,特别是小胶质细胞的活动,以此来调节炎症反应。③与小胶质细胞的激活相关:OPN能够激活小胶质细胞,使其在神经损伤或疾病中发挥免疫反应。这种激活可能有益(如清除损伤组织和促进修复),也可能有害(如过度激活导致神经炎症和进一步的神经损害)。④神经细胞间的交流:OPN参与神经细胞之间的信号传递,影响细胞黏附、迁移和存活。⑤参与神经退行性疾病:在阿尔茨海默病(Alzheimer’s disease,AD)、帕金森病(Parkinson’s disease,PD)等神经退行性疾病中,OPN的表达和调节发生改变,可能与发病机制相关。这些发现为理解CNS疾病的生物学基础和潜在的治疗策略提供了重要信息。
2 CNS中的OPN 2.1 小胶质细胞小胶质细胞是CNS中一种高度动态的细胞类型,在维持稳态与疾病进程中扮演关键角色。作为CNS中的主要免疫细胞,其功能类似于巨噬细胞,可保护和支持神经元功能。
OPN在神经胶质瘤相关小胶质细胞中高度表达,并且与肿瘤细胞的侵袭有关,据推测可增加肿瘤细胞在体内的侵袭和体外迁移,并被发现在不同类型的癌症中高度表达,例如肺癌、卵巢癌和神经胶质瘤等[13]。OPN在患有神经退行性疾病,如AD、多发性硬化(multiple sclerosis,MS)的患者和小鼠的小胶质细胞中同样均上调。在AD等神经退行性疾病中,包括小胶质细胞在内的几种髓系细胞都表达CD44[14]。通过多达12个外显子的选择性剪接和翻译后修饰,CD44可能实现巨大的异质性,这代表了其细胞和组织特异性功能的结构基础。这种多形性也反映在其下游信号通路中。虽然已知CD44不发挥内在的激酶活性,但其可能与几种细胞内信号分子相互作用,包括Ras-MAPK和PI3K/AKT通路。研究表明,包括p38 MAPK在内的MAPK信号通路的几个成员是核因子κB(nuclear factor kappa B,NF-κB)通路的上游激酶,被认为在炎症性CNS疾病中起关键作用[15]。此外,CD44被发现与转化生长因子β(transforming growth factor β,TGF-β)受体I和II相互作用[16]。TGF-β是小胶质细胞成熟的决定性细胞因子,与其他中枢相关巨噬细胞不同,小胶质细胞以TGF-β依赖的方式获得稳态基因表达特征[17],在TGFbR2缺陷小鼠中,稳态条件下的正常功能受损[18]。值得注意的是,TGF-β的细胞内作用是由TGF-β活化激酶1(TGF-β-activated kinase 1,TAK1)介导的,TAK1在小胶质细胞中表达,其激活导致IκB抑制因子激酶(inhibitor of kappa B kinase,IKK)复合物的磷酸化,从而激活NF-κB。此项研究证实了小胶质细胞来源的TAK1在CNS自身免疫中的作用,TAK1基因的髓细胞特异性缺失减轻了自身免疫性脑脊髓炎(experimental autoimmune encephalomyelitis,EAE)小鼠的疾病严重程度[19]。由此得出,OPN通过CD44-MAPK信号直接增加小胶质细胞中NF-κB的转录活性,并通过CD44-TGFbR1/2介导TAK1激活后抑制IKK磷酸化,以此间接增加NF-κB转录活性。
小胶质细胞最迟在缺血模型后d 3开始,可在缺血核心细胞外基质(extracellular matrix,ECM)中检测到OPN蛋白,但细胞内OPN在d 28出现,这表明sOPN在早期被释放,而iOPN在细胞质中开始积累。该研究还通过电镜发现,sOPN在变性神经元表面积累,小胶质细胞吞噬变性神经元碎片[20]。重组OPN(recombinant OPN,rOPN)促进猪的大脑中小胶质细胞的体外增殖,但使用抗体中和sOPN可消除这种增殖[21],提示sOPN在小胶质细胞增殖中的作用。然而,对脂多糖(lipopolysaccharides,LPS)刺激的小鼠原代小胶质细胞进行rOPN处理,并未增强小胶质细胞的增殖。相反,用rOPN处理的细胞表现出抗炎表型,促炎细胞因子表达降低,如白细胞介素6(interleukin 6,IL-6)和肿瘤坏死因子α(tumor necrosis factor α,TNF-α)。以上研究表明,OPN对小胶质细胞的作用并不单一,且是复杂多样的,可能与多种因素有关。但是OPN介导结果的复杂性并不是在小胶质细胞上所特有,其他免疫细胞在免疫应答中同样也表现出了OPN的多方面作用。
2.2 星形胶质细胞星形胶质细胞为数量远超神经元的主要神经胶质细胞类型,对CNS健康维护和功能执行至关重要。星形胶质细胞通过反应性星形胶质细胞的增生对所有形式的CNS损伤做出反应,这已成为CNS结构性病变的病理标志。OPN同样可在原代星形胶质细胞中表达。MS模型中,在脱髓鞘脑区检测到星形胶质细胞中OPN的表达[22]。研究表明,用促炎细胞因子,如TNF-α、IL-1β和干扰素γ(interferon γ,IFN-γ)预处理后,rOPN处理的星形胶质细胞显示出增殖和存活水平的上调。然而,在没有细胞因子预处理的情况下,rOPN对增殖和存活的影响并不明显,但被证明可诱导星形胶质细胞的迁移[23]。
体外在LPS刺激下,OPN敲除(knock out,KO)的星形胶质细胞GFAP的表达水平明显降低,OPN-KO小鼠大脑中反应性星形胶质细胞减少,且只有25%正常形态的星形胶质细胞产生,表明OPN参与且促进星形胶质细胞的形成。OPN-KO脑缺血模型小鼠显示,sOPN有助于促进缺血性脑卒中后血脑屏障的重建与神经血管和胶质瘢痕的修复[24]。这些研究提示了sOPN对星形胶质细胞的影响,然而,星形胶质细胞中OPN表达增强的机制,星形胶质细胞上的sOPN受体对星形胶质细胞的影响,以及iOPN是否也在星形胶质细胞中发挥一定作用,目前仍尚不明确。
2.3 神经元尽管CNS中OPN主要由小胶质细胞与星形胶质细胞产生,但其他CNS驻留细胞,例如运动神经元(motor neurons,MNs)也能够表达OPN。MNs根据其靶位点和受支配的肌肉纤维类型被分为α、γ和快、慢亚型,然而,很少有分子标记物可以区分这些亚型。OPN是小鼠脊髓中αMNs的选择性标志物,同时对NeuN(αM标志物)呈阳性,对Err3(γMNs标志物)呈阴性[25]。研究表明,在肌萎缩性侧索硬化症(amyotrophic lateral sclerosis,ALS)小鼠模型中,大量αMNs的细胞质中可检测到OPN(iOPN),也以细胞外间隙颗粒的形式在ECM中分泌和积累OPN(sOPN)[26]。与正常对照组相比较,AD患者大脑的神经元中OPN表达明显升高,并且累积在易受AD相关神经突丢失、变性和死亡影响的神经元内。此项研究结果表明,OPN可能在AD神经元异常重新进入细胞周期或神经元髓鞘再生中发挥作用[27]。此外,垂死的神经元可通过OPN表达与浸润的血液单核细胞合作,在受损伤的大脑中起修复作用。单核细胞吞噬表达OPN的受损垂死神经元,随后可能激活其炎症小体通路,导致焦亡。在此过程中,单核细胞释放出含有OPN的CD63阳性外泌体样囊泡。最后,OPN结合的外泌体促进神经元和星形胶质细胞向损伤核心伸长,以修复损伤的大脑[28]。
3 OPN在CNS中的作用 3.1 OPN在CNS中具有负向调控作用2001年,Chabas等[29]首次发现OPN在炎症性CNS疾病产生有害作用。OPN在MS和EAE模型大鼠的脊髓中是丰富的转录本,而且OPN-KO小鼠对EAE有一定抵抗能力,病变程度较轻,并且有所缓解。此外,rOPN的应用会导致EAE加重,但具体影响疾病进展的OPN部分尚不明确。进一步研究发现,OPN与αvβ1、αvβ3、αvβ5和α4β1、α5β1、α8β1、α9β1整合素等多种整合素相互作用,诱导细胞内信号通路的活化。α4β1-OPN相互作用阻断了叉头盒转录因子O3A(forkhead box class O3A,FOXO3A)的核易位,抑制促凋亡基因的转录,上调抗凋亡基因及Th1、Th17型细胞因子的表达[30]。这些OPN的直接效应是由凝血酶切割特异性介导的,因为给予凝血酶抑制剂或缺乏凝血酶切割位点的突变形式的OPN,降低了EAE的严重程度并抑制了Th1和Th17细胞因子的表达[31]。这些结果表明,OPN可能是MS治疗的潜在靶点。
OPN在包括PD和AD的神经退行性疾病中也发挥不利作用,这可能与触发自身性炎症性活动有关。研究表明,PD患者的血清和脑脊液中OPN表达水平升高,血清OPN水平与痴呆直接相关,而脑脊液OPN水平与严重的运动表型相关。此外,给予1-甲基-4-苯基-1, 2, 3, 6-四氢吡啶(1-methyl-4-phenyl-1, 2, 3, 6-tetrahydro pyridine,MPTP)建立PD模型后,与对照组相比,OPN-KO小鼠神经元细胞酪氨酸羟化酶阳性纤维减少,小胶质细胞激活降低,MPTP诱导损伤的易感性降低,减缓了PD的进展[32]。
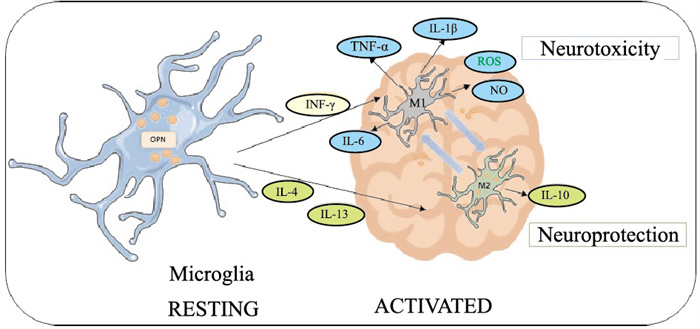
3.2 OPN在CNS中具有正向调控作用在CNS中,缺血损伤的内皮细胞、胶质细胞和神经元通过释放细胞因子激活炎症反应,并招募驻留的胶质细胞和外周免疫细胞,进而促进组织再生。在大鼠中,OPN在脑缺血急性期表达上调,特别是在梗死区或梗死周围区的巨噬细胞和小胶质细胞中。研究结果表明,OPN可以使小胶质细胞由M1表型向M2表型极化,并减少LPS刺激的M1型小胶质细胞[33]。动物模型中,脑室内注射OPN增加了梗死区/梗死周围区的M2胶质细胞,并在同侧丘脑中减少了M1型小胶质细胞的积累,增加了干细胞增殖。因此,调节小胶质细胞极化可能是减轻脑缺血后继发性细胞损伤的一个新的治疗靶点(Fig 1)。
|
| Fig 1 OPN regulates M1/M2 polarization of microglia |
在出血性卒中模型中OPN发挥神经保护作用也已被证实。在蛛网膜下腔出血(subarachnoid hemorrhage,SAH)模型中,OPN发挥间接神经保护作用是通过抑制STAT磷酸化、抑制MMP-9激活和激活MAPK来下调一氧化氮合酶(nitric oxide synthases,NOS)表达,从而保护血脑屏障免受破坏[34]。另有研究表明,SAH模型大鼠经鼻给予rOPN可改善神经功能障碍,减轻中性粒细胞浸润,降低M1小胶质细胞CD16、TNF-α表型和功能标志物的表达。CD206和IL-10的表达增加也证明了其能促进M2型小胶质细胞的激活。OPN可能通过整合素-黏着斑激酶(focal adhesion kinase,FAK)-STAT3和NF-κB信号通路,促进M2型小胶质细胞的激活,并减轻SAH后炎症反应。此外,OPN还可通过JAK2/STAT1通路减轻脑出血后高血糖大鼠的炎症,并减少脑水肿[35]。
4 结语由于OPN以及其基因SPP1常在许多致病条件下被检测到或表达高度上调,所以其常被认为是一种促炎或致病因子。然而,近年来多项研究证实了OPN的多样性。OPN-KO小鼠的多项研究表明,OPN在CNS中发挥着神经保护和神经损伤两种调控作用,这可能取决于OPN参与许多生物学环境、作为成熟蛋白的各种形式,以及在不同类型细胞中不同水平的翻译后修饰。在未来的研究中,了解OPN在不同细胞类型中如何平衡其促炎和抗炎作用,将是一个重要的研究领域。目前的研究在一定程度上揭示了OPN具有调节小胶质细胞表型、促进星形胶质细胞的结构完整性以及对神经元保护作用的潜力,据此推测,OPN可能成为治疗CNS疾病的新方向。但关于OPN在CNS疾病中的功能与影响,仍需深入探讨,因此,通过了解各种形式OPN来探究其各种功能,以及在不同CNS环境中的具体作用和机制至关重要。
| [1] |
苏明, 温进坤, 郑斌, 等. 三七总皂苷对血管平滑肌细胞迁移的抑制作用及机制探讨[J]. 中国药理学通报, 2010, 26(10): 1326-9. Su M, Wen J K, Zheng B, et al. Total panax notoginseng saponins inhibit the migration of vascular smooth muscle cells[J]. Chin Pharmacol Bull, 2010, 26(10): 1326-9. |
| [2] |
林全, 王良兴, 黄晓颖, 等. 葛根素对缺氧性大鼠肺组织骨桥蛋白及其整合素β3受体基因表达的影响[J]. 中国药理学通报, 2009, 25(7): 887-90. Lin Q, Wang L X, Huang X Y, et al. Effects of puerarin on expression of osteopontin and integrin β3 mRNA in lungs of rats induced by hypoxic hypercapnia[J]. Chin Pharmacol Bull, 2009, 25(7): 887-90. doi:10.3321/j.issn:1001-1978.2009.07.013 |
| [3] |
李承德, 王煜, 曲敬蓉, 等. 黄芪多糖对糖尿病大鼠肾脏TGF-β1/Smads信号通路的影响[J]. 中国药理学通报, 2018, 34(4): 512-6. Li C D, Wang Y, Qu J R, et al. Effects of astragalus polysaccharide on renal TGF-β1/Smads signaling pathway in rats with diabetes mellitus[J]. Chin Pharmacol Bull, 2018, 34(4): 512-6. doi:10.3969/j.issn.1001-1978.2018.04.015 |
| [4] |
Sodek J, Chen J, Nagata T, et al. Regulation of osteopontin expression in osteoblasts[J]. Ann N Y Acad Sci, 1995, 760: 223-41. doi:10.1111/j.1749-6632.1995.tb44633.x |
| [5] |
Jakovac H, Kezele T G, Šućurović S, et al. Osteopontin-metallothionein I/II interactions in experimental autoimmunune encephalomyelitis[J]. Neuroscience, 2017, 350: 133-45. doi:10.1016/j.neuroscience.2017.03.020 |
| [6] |
Xu C, Zhang Q, Zhang Y, et al. Lateralized response of skull bone marrow via osteopontin signaling in mice after ischemia reperfusion[J]. J Neuroinflammation, 2023, 20(1): 1-12. doi:10.1186/s12974-022-02688-4 |
| [7] |
S∅rensen E S, Petersen T E, H∅jrup P. Posttranslational modifications of bovine osteopontin: identification of twenty-eight phosphorylation and three O-glycosylation sites[J]. Protein Sci, 1995, 4(10): 2040-9. doi:10.1002/pro.5560041009 |
| [8] |
Ito K, Kon S, Nakayama Y, et al. The differential amino acid requirement within osteopontin in α4 and α9 integrin-mediated cell binding and migration[J]. Matrix Biol, 2009, 28(1): 11-9. doi:10.1016/j.matbio.2008.10.002 |
| [9] |
Cappellano G, Vecchio D, Magistrelli L, et al. The Yin-Yang of osteopontin in nervous system diseases: damage versus repair[J]. Neural Regen Res, 2021, 16(6): 1131-7. doi:10.4103/1673-5374.300328 |
| [10] |
Scatena M, Liaw L, Giachelli C M. Osteopontin: a multifunctional molecule regulating chronic inflammation and vascular disease[J]. Arterioscler Thromb Vasc Biol, 2007, 27(11): 2302-9. doi:10.1161/ATVBAHA.107.144824 |
| [11] |
Barry S T, Ludbrook S B, Murrison E, et al. Analysis of the α4β1 integrin-osteopontin interaction[J]. Exp Cell Res, 2000, 258(2): 342-51. doi:10.1006/excr.2000.4941 |
| [12] |
Liu T, Bai M, Liu M, et al. Novel synergistic mechanism of 11-keto-β-boswellic acid and Z-Guggulsterone on ischemic stroke revealed by single-cell transcriptomics[J]. Pharmacol Res, 2023, 193: 106803. doi:10.1016/j.phrs.2023.106803 |
| [13] |
Brown L F, Papadopoulos-Sergiou A, Berse B, et al. Osteopontin expression and distribution in human carcinomas[J]. Am J Pathol, 1994, 145(3): 610-23. |
| [14] |
Mrdjen D, Pavlovic A, Hartmann F J, et al. High-dimensional single-cell maping of central nervous system immune cells reveals distinct myeloid subsets in health, aging, and disease[J]. Immunity, 2018, 48(2): 380-95. doi:10.1016/j.immuni.2018.01.011 |
| [15] |
Mc Guire C, Prinz M, Beyaert R, et al. Nuclear factor kappa B (NF-κB) in multiple sclerosis pathology[J]. Trends Mol Med, 2013, 19(10): 604-13. doi:10.1016/j.molmed.2013.08.001 |
| [16] |
Bourguignon L Y W, Singleton P A, Zhu H, et al. Hyaluronan promotes signaling interaction between CD44 and the transforming growth factor β receptor I in metastatic breast tumor cells[J]. J Biol Chem, 2002, 277(42): 39703-12. doi:10.1074/jbc.M204320200 |
| [17] |
Butovsky O, Jedrychowski M P, Moore C S, et al. Identification of a unique TGF-β-dependent molecular and functional signature in microglia[J]. Nat Neurosci, 2014, 17(1): 131-43. doi:10.1038/nn.3599 |
| [18] |
Zöller T, Schneider A, Kleimeyer C, et al. Silencing of TGFβ signalling in microglia results in impaired homeostasis[J]. Nat Commun, 2018, 9(1): 4011. doi:10.1038/s41467-018-06224-y |
| [19] |
Goldmann T, Wieghofer P, Müller P F, et al. A new type of microglia gene targeting shows TAK1 to be pivotal in CNS autoimmune inflammation[J]. Nat Neurosci, 2013, 16(11): 1618-26. doi:10.1038/nn.3531 |
| [20] |
Shin Y J, Lim Kim H, Choi J S, et al. Osteopontin: correlation with phagocytosis by brain macrophages in a rat model of stroke[J]. Glia, 2011, 59(3): 413-23. doi:10.1002/glia.21110 |
| [21] |
Tambuyzer B R, Casteleyn C, Vergauwen H, et al. Osteopontin alters the functional profile of porcine microglia in vitro[J]. Cell Biol Int, 2012, 36(12): 1233-8. doi:10.1042/CBI20120172 |
| [22] |
Schröder L J, Mulenge F, Pavlou A, et al. Dynamics of reactive astrocytes fosters tissue regeneration after cuprizone-induced demyelination[J]. Glia, 2023, 71(11): 2573-90. doi:10.1002/glia.24440 |
| [23] |
Vay S U, Olschewski D N, Petereit H, et al. Osteopontin regulates proliferation, migration, and survival of astrocytes depending on their activation phenotype[J]. J Neurosci Res, 2021, 99(11): 2822-43. doi:10.1002/jnr.24954 |
| [24] |
Gliem M, Krammes K, Liaw L, et al. Macrophage-derived osteopontin induces reactive astrocyte polarization and promotes re-establishment of the blood brain barrier after ischemic stroke[J]. Glia, 2015, 63(12): 2198-207. doi:10.1002/glia.22885 |
| [25] |
Misawa H, Hara M, Tanabe S, et al. Osteopontin is an alpha motor neuron marker in the mouse spinal cord[J]. J Neurosci Res, 2012, 90(4): 732-42. doi:10.1002/jnr.22813 |
| [26] |
Morisaki Y, Niikura M, Watanabe M, et al. Selective expression of osteopontin in ALS-resistant motor neurons is a critical determinant of late phase neurodegeneration mediated by matrix metalloproteinase-9[J]. Sci Rep, 2016, 6(1): 27354. doi:10.1038/srep27354 |
| [27] |
Wung J K, Perry G, Kowalski A, et al. Increased expression of the remodeling-and tumorigenic-associated factor osteopontin in pyramidal neurons of the Alzheimer's disease brain[J]. Curr Alzheimer Res, 2007, 4(1): 67-72. doi:10.2174/156720507779939869 |
| [28] |
An J, Yang H, Yang E, et al. Dying neurons conduct repair processes in the injured brain through osteopontin expression in cooperation with infiltrated blood monocytes[J]. Glia, 2021, 69(4): 1037-52. doi:10.1002/glia.23947 |
| [29] |
Chabas D, Baranzini S E, Mitchell D, et al. The influence of the proinflammatory cytokine, osteopontin, on autoimmune demyelinating disease[J]. Science, 2001, 294(5547): 1731-5. doi:10.1126/science.1062960 |
| [30] |
Steinman L. Some misconceptions about understanding autoimmunity through experiments with knockouts[J]. J Exp Med, 1997, 185(12): 2039-41. doi:10.1084/jem.185.12.2039 |
| [31] |
Boggio E, Dianzani C, Gigliotti C L, et al. Thrombin cleavage of osteopontin modulates its activities in human cells in vitro and mouse experimental autoimmune encephalomyelitis in vivo[J]. J Immunol Res, 2016, 2016: 9345495. |
| [32] |
Maetzler W, Michelis J, Tomiuk J, et al. A single-nucleotide polymorphism of the osteopontin gene may contribute to a susceptibility to Lewy body disease[J]. J Neural Transm, 2009, 116(5): 599-605. doi:10.1007/s00702-009-0209-x |
| [33] |
Rabenstein M, Vay S U, Flitsch L J, et al. Osteopontin directly modulates cytokine expression of primary microglia and increases their survival[J]. J Neuroimmunol, 2016, 299: 130-8. doi:10.1016/j.jneuroim.2016.09.009 |
| [34] |
Suzuki H, Hasegawa Y, Kanamaru K, et al. Mechanisms of osteopontin-induced stabilization of blood-brain barrier disruption after subarachnoid hemorrhage in rats[J]. Stroke, 2010, 41(8): 1783-90. doi:10.1161/STROKEAHA.110.586537 |
| [35] |
Gong L, Manaenko A, Fan R, et al. Osteopontin attenuates inflammation via JAK2/STAT1 pathway in hyperglycemic rats after intracerebral hemorrhage[J]. Neuropharmacology, 2018, 138: 160-9. doi:10.1016/j.neuropharm.2018.06.009 |