


2. 深圳大学医学部生物医学工程学院,医学超声关键技术国家地方联合工程实验室,广东省生物医学信息检测与超声成像重点实验室,广东 深圳 518060
2. Guangdong Key Laboratory for Biomedical Measurements and Ultrasound Imaging, National-Regional Key Technology Engineering Laboratory for Medical Ultrasound, School of Biomedical Engineering, Shenzhen University Medical School, Guangdong Shenzhen 518060, China
炎症小体是一种较大的多聚体蛋白复合物,在响应外源性病原体或内源性危险信号时会引发炎症反应。NLRP3炎症小体是一种属于NOD样受体家族的模式识别受体(pattern recognition receptors,PRRs),主要由N末端PYD结构域,中间的NACHT结构域以及C末端的LRRs结构域组成。LRR识别并结合配体,具有ATP酶的活性的NACHT结构域自我寡聚并改变自我构型,NEK7等蛋白与NLRP3结合促进炎症小体形成,PYD结构域通过ASC与pro-caspase-1结合形成NLRP3炎症小体,介导caspase-1自我切割活化以切割pro-IL-1β和pro-IL-18产生成熟的IL-1β和IL-18,且活化的caspase-1能够切割Gasdermin D使其N端在膜上集聚形成孔洞,诱导细胞焦亡并介导IL-1β和IL-18等炎性因子分泌,继而诱导一系列炎症反应。根据PRRs的不同分为不同的炎症小体,包括NLRP3、NLRC4、NLRP1和AIM2等。其中NLRP3炎症小体不仅识别病原微生物,而且能够识别多种内源性危险信号,因此,NLRP3是当前炎症小体研究的热点[1]。
炎症小体的活化大致分为两个阶段:一是致敏阶段,通过激活TLRs促进NF-κB依赖的NLRP3与pro-IL-1β的表达;二是活化阶段,通过不同种类的激活剂活化NLRP3炎症小体[1]。值得注意的是,NLRP3炎症小体还存在非经典活化通路,即活化小鼠caspase-11(或人类caspase-4/5)而非caspase-1,从而切割GSDMD诱导细胞焦亡后,进而诱导caspase-1、NLRP3和IL-1β的活化[1]。
但NLRP3炎症小体活化的调控机制尚不清楚,NLRP3的翻译后修饰、离子流动和细胞器定位等均是影响NLRP3炎症小体活化的重要因素。NLRP3的翻译后修饰是调控其活化的重要开关,蛋白激酶A(protein kinase A,PKA)可以磷酸化人NLRP3的Ser295位点后抑制NLRP3的ATP酶活性,进而抑制NLRP3的活化;有趣的是蛋白激酶D (protein kinase D,PKD)磷酸化NLRP3的Ser295位点却是促进NLRP3释放到胞质中进而促进NLRP3的活化,关于两者的调控细节尚需进一步研究[2]。除Ser295位点外,Ser 5、Ser198和Tyr861等位点的磷酸化均有报道对NLRP3活化的调控作用,除NLRP3磷酸化修饰外,其泛素化、烷化以及s-亚硝酰化等修饰也均有报道。
NLRP3炎症小体活化过程中,离子流动对NLRP3的活化至关重要。K+外流是NLRP3炎症小体活化最常见的上游信号,胞外高浓度(30~50 mmol·L-1)的K+处理即可抑制NLRP3的活化。研究表明胞内K+浓度影响NEK7与NLRP3的结合;K+外流也可能诱导线粒体功能损伤和mROS的产生,从而促进NLRP3炎症小体的活化,然而K+抑制NLRP3炎症小体活化的具体机制尚不清楚[1]。除K+外流影响NLRP3炎症小体活化之外,Cl-、Na+、Ca2+、Fe2+、Zn2+和Mg2+等离子的流动对NLRP3炎症小体活化的影响均有报道。
NLRP3炎症小体活化与组装在胞质内进行,线粒体作为细胞能量中枢,对该过程有明显的调节作用。研究表明[3]NLRP3的激活剂可以诱导线粒体释放细胞内活性氧ROS活化NLRP3炎症小体并促进IL-1β的分泌,使用ROS的清除剂NAC(N-acetyl-L-cystine)或者抑制剂APDC(2R,4R-4-aminopyrrolidine-2,4-dicarboxylate)能够明显逆转该现象。而心磷脂是构成线粒体内膜的主要磷脂之一,当线粒体不稳定时可以诱导心磷脂的外移至线粒体外膜上;然后外膜上的心磷脂可以直接与NLRP3的LRRs结构域直接结合,进而活化NLRP3炎症小体[3],在无细胞系统里,加入心磷脂就足以活化NLRP3炎症小体。另外,线粒体相关分子,如mtDNA、Ca2+和线粒体外膜相关蛋白mitofusin 2等均有报道参与NLRP3炎症小体活化的调控。除线粒体外,内质网、高尔基体和溶酶体等细胞器均有报道参与NLRP3炎症小体活化的调控。
NLRP3炎症小体的活化过程中存在巨大的调控网络,其研究机制需进一步探究。但对NLRP3炎症小体的活化调控机制的了解,均为后续对NLRP3炎症小体相关疾病的治疗提供了理论基础和研究方向。
NLRP3炎症小体过度活化与人类炎症性和自身免疫性疾病等密切相关,例如,动脉粥样硬化、痛风、类风湿性关节炎、糖尿病等。靶向抑制NLRP3炎症小体活化是应对相关炎症性疾病重要机制之一。目前,抑制NLRP3的相关药物正在大力研发,主要以靶向抑制IL-1β为主。抑制IL-1β的药物能明显改善由NLRP3突变体的自激活导致的cryopyrin相关周期综合征(cryopyrin-associated periodic syndrome,CAPS)的症状,但仍然存在弊端。NLRP3炎症小体活化时,不仅仅产生IL-1β,还有IL-18以及细胞焦亡时释放的HMGB1等炎症因子也可能参与NLRP3炎症性疾病的发生发展过程[1]。另外,IL-1β也可能是由其他炎症小体活化后的产生,或者通过非炎症小体介导的途径释放[1]。所以,仅单纯的抑制IL-1β的功能是不够的,其效果只可能作用于一部分炎症反应,并且可能带来免疫抑制效应等副作用。找寻特异性靶向NLRP3炎症小体的抑制剂将成为治疗NLRP3炎症小体过度活化相关疾病的更好选择。下文将根据NLRP3炎症小体抑制剂的来源进行分类介绍。
1 内源小分子机体内源物质可以激活NLRP3炎症小体,也存在着内源小分子靶向抑制NLRP3炎症小体进行调节(Tab 1)。
| Inhibitor | Structure | IC50 | Targets | Specificity | Inhibition of priming | Relative diseases | Clinical status |
| BHB |  |
NA | Inhibits ASC oligomerization and K+ efflux | NLRP3 | No | MWS/FCAS/Gout | NA |
| Dopamine |  |
NA | Promotes NLRP3 ubiquitination | NLRP3 | No | PD/Peritonitis | NA |
| IL-4 | / | NA | Inhibits NLRP3 oligomerization | NLRP3 | No | TD2/AD | NA |
| NA: Not available. | |||||||
通常在高强度运动或热量限制等过程中,肝脏能够产生大量酮体作为替代性能量,而这些生理过程伴随机体免疫力的提高。这些酮体中的BHB能够直接抑制经典的NLRP3炎症小体活化和IL-1β的分泌,但并不活化AIM2和NLRC4炎症小体,和非经典的NLRP3炎症小体通路。进一步研究发现,BHB能够抑制K+的外流和ASC的聚合[4]。在NLRP3相关的炎症性疾病小鼠模型中,发现生酮饮食明显升高血清中BHB的水平;给予BHB处理后,体内caspase-1的活化和IL-1β的分泌明显被抑制。BHB能够抑制炎症反应说明自身免疫病患者可能通过饮食结构的调整降低疾病的炎症状态。
1.2 多巴胺(dopamine,DA)儿茶酚胺类神经递质DA与DA受体结合发挥重要的中枢生理功能。目前发现DA可以特异性抑制NLRP3而非AIM2和NLRC4炎症小体的活化,抑制IL-1β等炎症因子的分泌。多巴胺D1受体(dopamine D1 receptor,DRD1)是重要DA受体之一,DRD1激活后,进一步活化cAMP信号通路,cAMP结合NLRP3并诱导一种依赖于E3连接酶MARCH7的NLRP3泛素化和降解,最终抑制NLRP3的过度活化[5]。DA对MSU和LPS诱导炎症也有明显的抑制作用,并且DA或者DRD1激动剂可以缓解神经毒素MPTP诱导的神经炎症从而改善DA能神经元的损伤。提示DA或者DRD1激动剂可以作为靶向抑制NLRP3的药物治疗相关疾病。
1.3 白介素-4(interleukin-4,IL-4)Th2细胞分泌的IL-4具有抗炎作用,进一步研究表明IL-4作为机体内源性调控分子可以抑制NLRP3的聚合、NLRP3-ASC的相互作用以及caspase-1的活化和IL-1β分泌,而对AIM2和NLRC4炎症小体并无影响,并且这种抑制作用与NF-κB或者STAT6信号通路无关[6]。NLRP3定位于核周边并与大部分线粒体共定位,这与微管的多聚化相关,对炎症小体的组装和活化至关重要。IL-4能够明显抑制α-tubulin的多聚化,且抑制NLRP3定位于核周边和线粒体。提示IL-4有可能是通过调控微管的多聚化和NLRP3的分布,进而抑制了NLRP3的寡聚化和活化。
另外,机体内ω-3脂肪酸可以抑制NLRP3过度活化,机制是通过激活G蛋白偶联受体GPR40和GPR120,诱导ARRB2蛋白与NLRP3直接结合而发挥抑制效应[7]。胆汁酸通过TGR5-cAMP-PKA途径,促使NLRP3的泛素化及Ser291的磷酸化,发挥抑制NLRP3的作用[8]。IFN-β也具有很强的抑制NLRP3的作用,不仅依赖于磷酸化STAT1直接抑制NLRP3的活化,抑制IL-1β分泌,而且诱导IL-10的产生,进而抑制pro-IL-1β的表达[9]。
可见,不断探究机体内调控NLRP3活化的内源性小分子的分子机制,有助于有效进行炎症管理和对NLRP3相关炎症性疾病的预防和治疗。
2 小分子化合物越来越多调控NLRP3炎症小体活化的关键蛋白和信号通路被发现的同时,通过蛋白质结构模拟与计算机分析技术等筛选技术可以快速得到靶向NLRP3炎症小体的高效抑制剂并进行药效验证。此类抑制剂以小分子化合物为主(Tab 2)。
| Inhibitor | Structure | IC50 | Targets | Specificity | Inhibition of priming | Relative diseases | Clinical status |
| MCC950 |  |
8 nmol·L-1 | Proximal to Walker B motif; NACHT ATPase inhibitor | NLRP3 | No | CAPS/EAE/Gout/TD2/AD | Phase Ⅱ |
| CY09 | 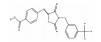 |
5 μmol·L-1 | Binds Walker A motif; NACHT ATPase inhibitor | NLRP3 | No | CAPS/TD2/Gout | NA |
| OLT1177 |  |
1 nmol·L-1 | NACHT ATPase inhibitor | NLRP3 | No | CAPS/Arthritis | Phase Ⅱ |
| MNS |  |
2 μmol·L-1 | NACHT ATPase inhibitor | NLRP3 | No | Burn | NA |
| Bay11-7082 |  |
5 μmol·L-1 | NACHT ATPase inhibitor | NLRP3/NLRC4 | Yes | Lupus nephritis/Psoriasis | NA |
| BOT-4-one |  |
0.6 μmol·L-1 | NACHT ATPase inhibitor | NLRP3/NLRC4 | Yes | Peritonitis | NA |
| NBC6 |  |
57 nmol·L-1 | Inhibits ASC oligomerization | NLRP3 | No | Endotoxemia | NA |
| DMSO |  |
NA | Reduces ROS | NLRP3/NLRC4 | Yes | IBD | NA |
| NA: Not available. | |||||||
MCC950是由二芳基磺酰脲改造的小分子化合物,特异性抑制经典和NLRP3非经典炎症小体活化,对NLRP1、AIM2和NLRC4炎症小体无影响。Coll等[10]初步探索发现MCC950可以抑制ASC的聚合,但不影响NLRP3-NEK7和NLRP3-ASC的相互作用。并且通过非共价结合NLRP3抑制ATP酶活性,从而抑制NLRP3的组装和活化。MCC950还可以对活化的NLRP3进行构象修饰,使其从开放状态转变成关闭状态,抑制了NLRP3的聚合和活化。MCC950不会抑制K+外流、Ca2+的内流,但可以抑制Cl-的外流,因此这也可能参与了抑制NLRP3活化的过程。目前MCC950对很多免疫病理模型具有明显的改善作用,临床上已开始MCC950治疗类风湿性关节炎的研究,但由于它对肝脏的毒性大,目前暂停于临床Ⅱ期试验。然而基于MCC950作为磺酰脲类药物抑制NLRP3炎症小体活化的特点,已筛选出IFM-2427、inzomelid和somalix等NLRP3炎症小体抑制剂进行临床研究[11]。
2.2 CY-09通过对Cl-通道蛋白抑制剂C-172进行改造,发现不影响Cl-的流动的C-172类似物CY-09。可以与ATP竞争性结合NACHT上的Walker A,影响ATP酶活性,进而特异性抑制NLRP3小体的组装和活化,但对AIM2和NLRC4无影响。独特的是CY-09对NLRP3和pro-IL-1β的表达,K+和Cl-的外流,线粒体损伤等均无影响。因此,与其他NLRP3炎症小体抑制剂相比,CY-09降低了脱靶效应。体内实验发现,CY-09对MSU诱导的小鼠腹膜炎和NLRP3突变引起的Muckle-Wells综合征(muckle-wells syndrome,MWS)有明显的保护作用;且对糖尿病小鼠的葡萄糖耐量、胰岛素敏感性有改善作用。另外,CY-09能够明显抑制痛风病人关节液细胞中炎症小体的活化,降低IL-1β的分泌水平[12]。
2.3 OLT1177OLT1177是β-磺酰基腈小分子,也是一种口服有效的选择性NLRP3炎症小体抑制剂。极低浓度(纳摩尔浓度)即可特异性抑制NLRP3炎症小体经典和非经典的活化形式,但是不能特异性抑制AIM2和NLRC4炎症小体。OLT1177并不影响NLRP3和pro-IL-1β的表达和K+的外流,而是与NLRP3直接结合,进而抑制了NACHT的ATP酶活性,影响NLRP3活化。LPS诱导的系统性炎症和痛风性关节炎小鼠模型中,OLT1177在均有明显抑制炎症的作用。临床试验发现,连续8天口服1 000 mg的OLT1177无任何临床副作用;治疗心力衰竭的药效得到了初步验证,具有极大的临床转化的潜在价值。目前OLT1177处于临床Ⅱ期的研究[13]。
2.4 MNS(3,4-methylenedioxy-β-nitrostyrene)利用小鼠巨噬细胞在激酶抑制剂文库中筛选出众多小分子化合物,MNS是其中之一。虽然可作为Syk激酶的抑制剂,但MNS是直接与NLRP3结合,通过抑制NLRP3的ATP酶活性影响NLRP3的聚合,进而特异性抑制NLRP3炎症小体的活化,并且对AIM2和NLRC4无影响[14]。MNS的硝基乙烯基侧链对于抑制NLRP3活性至关重要。因此,挖掘具有相同侧链的化学小分子可能更多新的NLRP3炎症小体抑制剂。葡聚糖硫酸钠诱导的结肠炎小鼠模型体内实验表明MNS通过抑制NLRP3炎症小体活化,减低相关炎症因子的分泌,减轻炎症反应[15]。
2.5 Bay 11-7082Bay11-7082是NF-κB通路中IKKβ激酶的抑制剂。Bay11-7082及结构相关的乙烯基砜化合物,可以直接抑制NLRP3的ATP酶的活性,选择性抑制NLRP3炎症小体活化,且不依赖于NF-κB的活性。Bay11-7082对NLRP1无抑制作用,但对NLRC4有较弱的抑制作用,可能是Bay 11-7082影响了巨噬细胞对salmonella的吞噬或者直接的杀菌效应引起。体内实验发现,Bay 11-7082能够明显抑制小鼠狼疮性肾炎和银屑病中NLRP3的活化,减轻炎症反应[16]。因此,含乙烯基砜化合物有望成为研究治疗NLRP3疾病的药物分子基础。
2.6 BOT-4-one苯并噻二唑衍生物BOT-4-one具有抗肿瘤和免疫调节作用。可以烷基化修饰NLRP3,抑制NLRP3的ATP酶活性,最终抑制NLRP3活化。Shim等[17]研究发现,NLRP3的烷基化试剂,包括BOT-4-one、Bay11-7082和MNS,均可以增加NLRP3的泛素化水平,从而增强对NLRP3的抑制作用;而烷基化抑制剂L-cysteine可逆转NLRP3的泛素化。BOT-4-one不能抑制AIM2,但有较弱的抑制NLRC4的作用。BOT-4-one可以抑制MSU诱导的腹膜炎小鼠体内NLRP3的活化,减轻炎症反应。
2.7 NBC62-APB(2-aminoethoxy diphenylborinate)虽然作为NLRP3炎症小体的抑制剂,但同时也能抑制Ca2+的流动。为了不影响Ca2+的流动从而增加胞内稳定性,Baldwin等[18]发现,2-APB的氧杂硼环和三氯甲基是抑制NLRP3的关键性基团,接着以2-APB作为化学骨架改造出一系列NBC小分子化合物(novel boron compounds),如NBC6等,除了同样具有抑制NLRP3的功能外,不再影响Ca2+的流动,减少副作用。且这些改造后的分子可以抑制LPS诱导的系统性炎症反应,提示含氧杂硼环类的小分子有望开发为治疗NLRP3相关疾病的一类的药物。
2.8 二甲基亚砜(dimethylsulfoxide,DMSO)DMSO能够抑制ASC聚合,caspase-1活化和IL-1β分泌,它是NLRP3的选择性抑制剂。机制探究发现DMSO在LPS处理之前加入,可以抑制pro-IL-1β表达,在LPS处理之后加入可以抑制IL-1β的成熟。同时,DMSO可作为抗氧化剂和ROS的清除剂,减少ROS的产生,抑制NLRP3的活化。另外,DMSO对NLRC4炎症小体也有部分作用。体内实验发现,DMSO能够明显抑制内毒素败血症和炎症性肠炎。值得注意的是,DMSO是两亲性分子,常作为水不溶性药物的溶剂,而实验中的炎症小体激动剂和抑制剂都可能溶解于DMSO中,当浓度超过2%时,作为溶剂的DMSO就能表现出抑制炎症小体的活性,低于1%则不行[19]。所以在研究炎症小体调节剂时,若DMSO浓度过高时,必须设置DMSO单独组。
除此之外,众多医药公司通过筛选小分子化合物寻求NLRP3炎症小体的抑制剂进行临床试验,如瑞士诺华制药的DFV890进行冠状病毒相关急性呼吸窘迫综合征、家族性寒冷自身炎症综合征和膝骨关节炎的临床研究,印度Zydus公司的ZYIL1进行CAPS和痛风性关节炎的相关临床研究[20]。虽然目前已发现很多小分子化合物能够有效地抑制NLRP3的活化,但是其作用靶点特异性及毒副作用仍需进一步探索;未来应该对这些已经发现或者新合成的小分子,保留其发挥作用的官能团,对原骨架进行化学修饰,改造出特异性强且安全有效的NLRP3抑制剂。
3 天然植物成分许多传统中药材具有抗炎作用,但由于采用植物入药方式,其成分复杂多样,作用机制不明。如今,分离与提取技术日益成熟,多种中药有效成分得以发现,并证实可以通过抑制NLRP3炎症小体活化发挥抗炎杀菌等作用。这不仅进一步阐明了中药药理机制,且有利于扩展中药的使用范围(Tab 3)。
| Inhibitor | Structure | IC50 | Targets | Specificity | Inhibition of priming | Relative diseases | Clinical status |
| Oridonin |  |
0.5 μmol·L-1 | Binds NLRP3-Cys279 and inhibits NLRP3-NEK7 interaction | NLRP3 | No | Gout/TD2/Peritonitis | NA |
| Resveratrol |  |
NA | Inhibits NLRP3-ASC interaction and mitochondrial damage | NLRP3 | Yes | Gout | NA |
| Parthenolide |  |
5 μmol·L-1 | NACHT ATPase inhibitor and caspase-1 inhibitor | NLRP3/NLRC4/AIM2/NLRP1 | Yes | NA | NA |
| Colchicine |  |
NA | Inhibits α-tubulin acetylation | NLRP3 | Yes | Gout/Familial mediterranean fever | NA |
| Scutellarin | 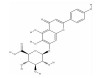 |
NA | Ser291 phosphorylation of NLRP3 | NLRP3 | Yes | Pulmonary fibrosis/Sepsis | NA |
| NA: Not available. | |||||||
冬凌草甲素来源于冬凌草,是AKT抑制剂,在脓毒血症、阿尔茨海默和肠炎等动物模型中可以明显缓解炎症反应,但其抗炎机制仍不清楚。He等[21]发现冬凌草甲素可在不影响NLRP3和pro-IL-1β的表达的情况下特异性抑制NLRP3炎症小体活化,其自身拥有碳碳双键可与NLRP3的Cys279不可逆地共价结合,通过抑制NLRP3-NEK7的相互作用而影响NLRP3炎症小体的组装和活化。体内研究发现,冬凌草甲素通过抑制NLRP3活化,在腹膜炎、痛风性关节炎、结肠炎、肥胖及糖尿病等炎症性疾病相关模型中表现出明显的预防和治疗效果[21]。
3.2 白藜芦醇白藜芦醇是一种具有抗氧化、抗炎的功能的多酚类化合物,主要存在于紫葡萄皮、桑葚皮等植物中。不仅可以通过抑制NF-κB通路抑制NLRP3表达,也可激活AMPK,诱导细胞自噬,保护线粒体并减少ROS产生,特异性抑制NLRP3炎症小体的活化。再者,由于α-tubulin的乙酰化在空间上有利于ASC与NLRP3的结合,而白藜芦醇可以有效地抑制α-tubulin的乙酰化,阻止ASC与NLRP3的结合,从而抑制NLRP3的活化[22]。在MSU诱导的小鼠腹膜炎中,白藜芦醇通过抑制体内NLRP3炎症小体的活化明显抑制小鼠体内的炎症。另一个微管药物秋水仙碱同样能够调控微管的组装及抑制α-tubulin的乙酰化,抑制NLRP3的活化,但是毒副作用大。白藜芦醇具有毒性较低的特点,可作为治疗NLRP3相关疾病的候选药物。
3.3 小白菊内酯小白菊内酯是一种倍半萜烯内酯类化合物,具有抗肿瘤及抗炎活性。它的特点是直接抑制NLRP3的ATP酶活性达到抑制NLRP3炎症小体活化目的。还能直接对caspase-1 p20上的Cys285进行烷基化修饰,抑制caspase-1活性,并且能够抑制NLRP1、NLRC4和AIM2等多种炎症小体的活化[23]。因此,小白菊内酯是NLRP3的选择性抑制剂,对炎症小体活化过程发挥多方面的抑制作用。
3.4 秋水仙素秋水仙素是一种三环类生物碱,微管的经典解聚剂,临床上用来治疗痛风及家族性地中海热。研究表明,秋水仙素可以抑制乙酰化α-tubulin,从而抑制线粒体的运输及影响ASC与NLRP3的结合,进而抑制NLRP3的活化;也可以抑制P2X7R形成的孔洞,抑制ROS的产生和IL-1β的释放;再者,秋水仙素还可以抑制pyrin(MEFV)基因的表达,进而抑制NLRP3炎症小体的组装。但秋水仙素的细胞毒性和副作用较大,不适用于如糖尿病、动脉粥样硬化等需要长期治疗的疾病[24]。
3.5 野黄芩苷野黄芩苷是一种具有抗炎和抗氧化活性的黄酮类药物,主要存在于灯盏细辛和黄芩等植物中。研究表明,野黄芩苷不仅能通过NF-κB通路抑制NLRP3表达,也能通过激活cAMP-PKA信号通路,磷酸化NLRP3的Ser291,抑制NLRP3的活化[25],体内实验中野黄芩苷能够通过抑制NLRP3炎症小体活化,在败血症和肺纤维化等炎症性疾病中有明显的治疗和预防效果。值得注意的是,相比野黄芩苷在苯环上少一个羟基的黄芩苷同样能激活PKA抑制NLRP3活化[26],但两者异同尚不清楚,野黄芩苷及其衍生物对NLRP3的直接作用机制值得进一步探究。
除了上述典型的植物药成分外,菊花和艾蒿的提取物可以通过抑制ASC的磷酸化,阻断ASC的聚合,抑制NLRP3活化。山奈酚和厚朴酚通过激活细胞自噬途径,对NLRP3进行降解,发挥抑制作用。其他中药成分如胡椒碱、异甘草素、萝卜硫素、芦荟、姜黄素、槲皮素、水飞蓟宾和芒果苷等对NLRP3炎症小体也有明显的抑制作用[27]。天然植物中提取的有效成分通常具有多靶点效应,需多种机制抑制NLRP3炎症小体活化,其药理作用需要进一步研究。但由于植物药多年来的临床运用,药物的安全性较高,相较其他药物更易于临床转化,能拓展各种植物药在NLRP3相关疾病治疗上的潜在应用价值,并为其临床合理用药奠定科学基础。
4 临床药物临床上有很多用于治疗急性和慢性炎症的药物,但其抗炎机制不完全清楚,应用上受到严重局限。自NLRP3炎症小体发现以来,对许多该类临床药物的药理研究有了新的方向(Tab 4)。
| Inhibitor | Structure | IC50 | Targets | Specificity | Inhibition of priming | Relative diseases | Clinical status |
| Glyburide |  |
2 μmol·L-1 | Inhibits K+ efflux | NLRP3 | No | TD2/FASC/Colitis | NA |
| Tranilast | 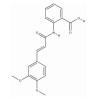 |
50 μmol·L-1 | Binds NACHT and inhibits NLRP3 oligomerization | NLRP3 | Yes | CAPS/Gout/TD2 | Approved |
| Flufenamic acid |  |
50 μmol·L-1 | Inhibits Cl- efflux | NLRP3 | No | AD | NA |
| NA: Not available. | |||||||
格列苯脲是临床治疗Ⅱ型糖尿病的常规用药,同时是第一个被证实具有抑制NLRP3的磺酰脲类药物。不抑制NLRP3的表达及NLRP3的ATP酶活性,通过抑制K+的外流来抑制NLRP3的活化。格列苯脲的苯甲酰胺基和磺酰基对NLRP3的抑制作用至关重要。可以明显改善多种NLRP3相关炎症性疾病,如内毒素休克以及结肠炎等[28]。在格列苯脲的基础上改造成缺少环己基脲基团的化合物16673-34-0能有效预防NLRP3介导的小鼠缺血/再灌注后的心肌损伤而不影响葡萄糖的代谢[29]。
4.2 曲尼司特曲尼司特临床上常用于抗过敏、抗炎,能抑制IgE诱导的肥大细胞中组胺的释放,起到抗炎、抗过敏的作用[30]。能直接通过与NLRP3的NACHT结构域结合,进而抑制NLRP3-NLRP3的相互结合,以及抑制随后的ASC寡聚化;对K+和Cl-的外流、线粒体的损伤、ROS产生以及NEK7-NLRP3的互作均无影响,不影响NLRP3的表达,但是对pro-IL-1β的表达有抑制作用。与其他抑制剂不同的是,曲尼司特对AIM2和NLRC4炎症小体均有作用。在MSU诱导的关节炎、MWS和Ⅱ型糖尿病等小鼠模型中,研究发现曲尼司特对通过降低炎症发挥良好的治疗作用。由于曲尼司特的毒副作用极小,甚至大多数患者每日的服用量可达到600 mg·d-1。因此,在临床治疗运用上较其他NLRP3的抑制剂具有优势。
4.3 氟芬那酸氟芬那酸是一种非甾体类抗炎药,可以抑制NLRP3炎症小体活化,但是对AIM2和NLRC4无影响。氟芬那酸作用于Cl-通道-体积调节的阴离子通道(volume-regulated anion channel,VRAC),抑制Cl-的外流,从而抑制NLRP3炎症小体活化。VRAC的特异性抑制剂DCPIB能够抑制ATP诱导的IL-1β释放,提示靶向于VRAC的药物,有望于用于治疗NLRP3炎症小体活化的相关疾病[31]。在阿尔茨海默症小鼠模型中,氟芬那酸能够通过调节Syk-AMPK途径来抑制小胶质细胞中NLRP3炎症小体活化来改善认知障碍[32]。氟芬那酸已在临床上常规用于消炎镇痛,其药代动力学和毒性研究较为明确,因此更容易应用于NLRP3炎症小体活化相关炎症性疾病的治疗。
除此以外,临床上的抗抑郁药氟西汀;降血糖药二甲双胍和比格列酮;非甾体类抗炎药甲灭酸、阿司匹林和吲哚美辛等均有报道可以抑制NLRP3炎症小体的活化[33],这些发现不仅加深了药理机制探究,且扩大该类药物的使用范围,老药新用以快速开发药物的潜在价值,但临床上其他各种抗炎药物的机制是否与NLRP3炎症小体之间存在着联系,仍需被进一步验证与阐明。
5 小结NLRP3炎症小体的正常活化,有利于宿主抵御病原微生物的感染,维持机体内环境稳定。但当NLRP3炎症小体过度活化时,会导致各种炎症性疾病发生。随着炎症性疾病机制的深入研究,NLRP3炎症小体活化是其重要机制之一,因此,寻找NLRP3的抑制剂是有效控制炎症的重要方向。近年来,研究报道了NLRP3众多新的研究靶点。例如,谷胱甘肽转移酶ω1-1(glutathione transferase omega-1,GSTO1-1)通过使NEK7的Cys253去谷氨酰胺化,促进NEK7与NLRP3结合,而活化NLRP3炎症小体[34]。GSTO1-1的抑制剂C1-27可以抑制体内外NLRP3的活化;因此GSTO1-1可以作为NLRP3活化的调控蛋白,寻找更有效的GSTO1-1抑制剂将成为新的研究方向。另外,胞内的高尔基体反面网络结构(trans-Golgi network,TGN)可以被多种NLRP3炎症小体激活剂诱导解体,解体后形成分散的特殊结构(dispersed TGN,dTGN)。而dTGN通过磷脂PtdIns4P诱导NLRP3的转运和聚集而激活NLRP3[35]。因此,dTGN结构形成作为NLRP3炎症小体活化的重要靶点值得深入研究,也为新的NLRP3抑制剂的寻找提供了方向。
如今大多NLRP3炎症小体抑制剂是从抑制NLRP3炎症小体的活化机制的角度去抑制活化,并不能保证其特异性抑制作用,一是炎症小体存在多种亚型;二是NLRP3炎症小体活化调控机制丰富。因此,研发NLRP3炎症小体抑制剂的主要研究方应是直接靶向NLRP3从而特异性抑制NLRP3炎症小体的活化。临床上缺乏直接靶向抑制NLRP3的药物,MCC950、CY-09、OLT1177、曲尼司特和冬凌草甲素等,它们都是直接靶向于NLRP3本身,而不影响炎症小体其他组成成分(如NEK7、ASC、caspase-1或者IL-1β)。这些抑制剂目前被使用于临床实践或正在进行第二阶段的临床试验,初步显示了较高的安全性,但离临床使用还有需进一步探索,因此也希望未来能够找寻更多直接靶向抑制NLRP3的临床药物。
| [1] |
Kelley N, Jeltema D, Duan Y, et al. The NLRP3 Inflammasome: an overview of mechanisms of activation and regulation[J]. Int J Mol Sci, 2019, 20(13): 3328. doi:10.3390/ijms20133328 |
| [2] |
Zhang Z, Meszaros G, He W T, et al. Protein kinase D at the Golgi controls NLRP3 inflammasome activation[J]. J Exp Med, 2017, 214(9): 2671-93. doi:10.1084/jem.20162040 |
| [3] |
Iyer S S, He Q, Janczy J R, et al. Mitochondrial cardiolipin is required for NLRP3 inflammasome activation[J]. Immunity, 2013, 39(2): 311-23. doi:10.1016/j.immuni.2013.08.001 |
| [4] |
Youm Y H, Nguyen K Y, Grant R W, et al. The ketone metabolite β-hydroxybutyrate blocks NLRP3 inflammasome-mediated inflammatory disease[J]. Nat Med, 2015, 21(3): 263-9. doi:10.1038/nm.3804 |
| [5] |
Possemato E, La Barbera L, Nobili A, et al. The role of dopamine in NLRP3 inflammasome inhibition: implications for neurodegenerative diseases[J]. Ageing Res Rev, 2023, 87: 101907. doi:10.1016/j.arr.2023.101907 |
| [6] |
Hwang I, Yang J, Hong S, et al. Non-transcriptional regulation of NLRP3 inflammasome signaling by IL-4[J]. Immunol Cell Biol, 2015, 93(6): 591-9. doi:10.1038/icb.2014.125 |
| [7] |
Yan Y, Jiang W, Spinetti T, et al. Omega-3 fatty acids prevent inflammation and metabolic disorder through inhibition of NLRP3 inflammasome activation[J]. Immunity, 2013, 38(6): 1154-63. doi:10.1016/j.immuni.2013.05.015 |
| [8] |
Guo C, Xie S, Chi Z, et al. Bile acids control inflammation and metabolic disorder through inhibition of NLRP3 inflammasome[J]. Immunity, 2016, 45(4): 802-16. doi:10.1016/j.immuni.2016.09.008 |
| [9] |
Guarda G, Braun M, Staehli F, et al. Type Ⅰ interferon inhibits interleukin-1 production and inflammasome activation[J]. Immunity, 2011, 34(2): 213-23. doi:10.1016/j.immuni.2011.02.006 |
| [10] |
Coll R C, Robertson A A, Chae J J, et al. A small-molecule inhibitor of the NLRP3 inflammasome for the treatment of inflammatory diseases[J]. Nat Med, 2015, 21(3): 248-55. doi:10.1038/nm.3806 |
| [11] |
Li H, Guan Y, Liang B, et al. Therapeutic potential of MCC950, a specific inhibitor of NLRP3 inflammasome[J]. Eur J Pharmacol, 2022, 928: 175091. doi:10.1016/j.ejphar.2022.175091 |
| [12] |
Jiang H, He H, Chen Y, et al. Identification of a selective and direct NLRP3 inhibitor to treat inflammatory disorders[J]. J Exp Med, 2017, 214(11): 3219-38. doi:10.1084/jem.20171419 |
| [13] |
Marchetti C, Swartzwelter B, Koenders M I, et al. NLRP3 inflammasome inhibitor OLT1177 suppresses joint inflammation in murine models of acute arthritis[J]. Arthritis Res Ther, 2018, 20(1): 169. doi:10.1186/s13075-018-1664-2 |
| [14] |
He Y, Varadarajan S, Muñoz-Planillo R, et al. 3, 4-methylenedioxy-β-nitrostyrene inhibits NLRP3 inflammasome activation by blocking assembly of the inflammasome[J]. J Biol Chem, 2014, 289(2): 1142-50. doi:10.1074/jbc.M113.515080 |
| [15] |
Zheng J, Jiang Z, Song Y, et al. 3, 4-Methylenedioxy-β-nitrostyrene alleviates dextran sulfate sodium-induced mouse colitis by inhibiting the NLRP3 inflammasome[J]. Front Pharmacol, 2022, 13: 866228. doi:10.3389/fphar.2022.866228 |
| [16] |
Zhao J, Zhang H, Huang Y, et al. Bay11-7082 attenuates murine lupus nephritis via inhibiting NLRP3 inflammasome and NF-κB activation[J]. Int Immunopharmacol, 2013, 17(1): 116-22. doi:10.1016/j.intimp.2013.05.027 |
| [17] |
Shim D W, Shin W Y, Yu S H, et al. BOT-4-one attenuates NLRP3 inflammasome activation: NLRP3 alkylation leading to the regulation of its ATPase activity and ubiquitination[J]. Sci Rep, 2017, 7(1): 15020. doi:10.1038/s41598-017-15314-8 |
| [18] |
Baldwin A G, Rivers-Auty J, Daniels M J D, et al. Boron-based inhibitors of the NLRP3 inflammasome[J]. Cell Chem Biol, 2017, 24(11): 1321-35. e5. doi:10.1016/j.chembiol.2017.08.011 |
| [19] |
Ahn H, Kim J, Jeung E B, et al. Dimethyl sulfoxide inhibits NLRP3 inflammasome activation[J]. Immunobiology, 2014, 219(4): 315-22. doi:10.1016/j.imbio.2013.11.003 |
| [20] |
Clinical Trials. gov[EB/OL]. https://clinicaltrials.gov/.
|
| [21] |
He H, Jiang H, Chen Y, et al. Oridonin is a covalent NLRP3 inhibitor with strong anti-inflammasome activity[J]. Nat Commun, 2018, 9(1): 2550. doi:10.1038/s41467-018-04947-6 |
| [22] |
Misawa T, Saitoh T, Kozaki T, et al. Resveratrol inhibits the acetylated α-tubulin-mediated assembly of the NLRP3-inflammasome[J]. Int Immunol, 2015, 27(9): 425-34. doi:10.1093/intimm/dxv018 |
| [23] |
Juliana C, Fernandes-Alnemri T, Wu J, et al. Anti-inflammatory compounds parthenolide and Bay 11-7082 are direct inhibitors of the inflammasome[J]. J Biol Chem, 2010, 285(13): 9792-802. doi:10.1074/jbc.M109.082305 |
| [24] |
李陈广, 吴晓君, 肖礼祖. α-微管蛋白乙酰化调控NLRP3炎症小体活化的研究进展[J]. 中国免疫学杂志, 2023, 39(2): 427-33. Li C G, Wu X J, Xiao L Z. Research progress of regulation of NLRP3 inflammasome activation by α-tubulin acetylation[J]. Chin. J Immunol, 2023, 39(2): 427-33. doi:10.3969/j.issn.1000-484X.2023.02.038 |
| [25] |
景艳芸, 李陈广, 颜亮, 等. 灯盏花乙素对J774A.1巨噬细胞中ATP诱导的炎症小体活化和细胞焦亡的影响[J]. 中国药理学通报, 2018, 34(2): 174-80. Jing Y Y, Li C G, Yan L, et al. Influences of scutellarin on ATP-induced inflammasome activation and pyroptosis in J774A. 1 macrophages[J]. Chin Pharmacol Bull, 2018, 34(2): 174-80. doi:10.3969/j.issn.1001-1978.2018.02.007 |
| [26] |
Li C G, Yan L, Mai F Y, et al. Baicalin inhibits NOD-like receptor family, pyrin containing domain 3 inflammasome activation in murine macrophages by augmenting protein kinase A signaling[J]. Front Immunol, 2017, 8: 1409. doi:10.3389/fimmu.2017.01409 |
| [27] |
Liang Y D, Bai W J, Li C G, et al. Piperine suppresses pyroptosis and interleukin-1β release upon ATP triggering and bacterial infection[J]. Front Pharmacol, 2016, 7: 390. |
| [28] |
Lamkanfi M, Mueller J L, Vitari A C, et al. Glyburide inhibits the Cryopyrin/Nalp3 inflammasome[J]. J Cell Biol, 2009, 187(1): 61-70. doi:10.1083/jcb.200903124 |
| [29] |
Marchetti C, Chojnacki J, Toldo S, et al. A novel pharmacologic inhibitor of the NLRP3 inflammasome limits myocardial injury after ischemia-reperfusion in the mouse[J]. J Cardiovasc Pharmacol, 2014, 63(4): 316-22. doi:10.1097/FJC.0000000000000053 |
| [30] |
Darakhshan S, Pour A B. Tranilast: a review of its therapeutic applications[J]. Pharmacol Res, 2015, 91: 15-28. doi:10.1016/j.phrs.2014.10.009 |
| [31] |
Daniels M J, Rivers-Auty J, Schilling T. Fenamate NSAIDs inhibit the NLRP3 inflammasome and protect against Alzheimer's disease in rodent models[J]. Nat Commun, 2016, 7: 12504. doi:10.1038/ncomms12504 |
| [32] |
Jung E S, Suh K. Amyloid-β activates NLRP3 inflammasomes by affecting microglial immunometabolism through the Syk-AMPK pathway[J]. Aging Cell, 2022, 21(5): e13623. doi:10.1111/acel.13623 |
| [33] |
Batiha G E, Al-Gareeb A I, Rotimi D, et al. Common NLRP3 inflammasome inhibitors and Covid-19: Divide and conquer[J]. Sci Afr, 2022, 18: e01407. |
| [34] |
Hughes M M, Hooftman A, Angiari S, et al. Glutathione transferase omega-1 regulates NLRP3 inflammasome activation through NEK7 deglutathionylation[J]. Cell Rep, 2019, 29(1): 151-61. e5. doi:10.1016/j.celrep.2019.08.072 |
| [35] |
Chen J, Chen Z J. PtdIns4P on dispersed trans-Golgi network mediates NLRP3 inflammasome activation[J]. Nature, 2018, 564(7734): 71-6. doi:10.1038/s41586-018-0761-3 |