


2. 广东药科大学药学院,广东 广州 510008;
3. 中山大学药学院,广东 广州 510275
2. School of Pharmacy, Guangdong Pharmaceutical University, Guangzhou 510008, China;
3. School of Pharmacy, Sun Yat-Sun University, Guangzhou 510275, China
心肌纤维化是指在心肌组织结构中胶原纤维大量积聚、细胞外基质(extracellular matrix,ECM)明显升高或其成分发生改变, 该病理过程减弱了心肌舒张及收缩功能, 是导致心力衰竭发生的重要原因之一[1-2]。研究已证实心肌纤维化与心房颤动、室性心动过速、心室颤动的发生发展密切相关[3]。抗纤维化治疗有望成为治疗心律失常的新型手段。
心肌纤维化主要是由心肌成纤维细胞的激活所介导的,这是一个由成纤维细胞通过增殖和收缩等方式转化为肌成纤维细胞的过程,在此过程中基因表达增加,如ACTA2(编码α-平滑肌肌动蛋白,α-SMA)。此外,肌成纤维细胞还通过产生和分泌基质金属蛋白酶(matrix metalloproteinases,MMPs) 和基质金属蛋白酶组织抑制剂(tissue inhibitor of metalloprotein-ase,TIMPs)来驱动组织间ECM重构,转化生长因子β(transforming growth factor β,TGF-β)表达水平升高等[4-5]。TGF-β蛋白家族在成纤维细胞激活和ECM产生中起着关键作用[5-6]。Smads是TGF-β蛋白家族中表征最好的细胞内效应子,TGF-β1能够明显激活Smads依赖性信号级联反应,在纤维化的发生发展中起着关键作用[7]。迄今为止,尚无临床治疗方法能有效阻断心肌纤维化且无副作用,其具体病理机制仍需要待进一步阐明。
我们前期研究发现,ZLY18是一种新型的四联FFA1/PPAR-α/γ/δ激动剂,在调节脂质合成、氧化应激、炎症和纤维化相关基因表达方面具有明显的作用,如ZLY18能够明显抑制TGF-β1、TIMP-1和1型胶原蛋白α (type 1 collagen,COL1A1)等纤维化相关基因的表达。此外,ZLY18对非酒精性脂肪性肝炎(NASH)引起的脂肪肝和纤维化具有明显的改善作用,并且对四氯化碳(CCl4)诱导的肝纤维化的预防作用强于吡非尼酮[8]。基于此,本研究旨在探究ZLY18对AngⅡ诱导的心肌纤维化的作用及其调控机制,为心肌纤维化导致的心脏疾病提供新治疗策略。
1 材料与方法 1.1 材料 1.1.1 细胞与实验动物本实验所采用的心肌成纤维细胞均为从成年雄性Sprague Dawley(SD)大鼠分离所得。SD大鼠购自中山大学实验动物中心,雄性C57BL/6小鼠,6~8周龄,体质量(20±2)g,用于构建Ang Ⅱ诱导的心肌纤维化动物模型,购自广东省医学实验动物中心。动物质量合格证(No.44007200085381)。所有的实验操作均在中山大学动物中心屏障环境内实施完成。所有动物实验流程均严格按照《Guide for the Care and Use of Laboratory Animals》执行。
1.1.2 试剂BCA蛋白定量试剂盒(Pierce,23227);胎牛血清(Gibco,10270106); α-Tubulin抗体(Sigma,F2168-.2ML); 4%多聚甲醛(武汉博士德,AR1069);RIPA裂解液(武汉博士德,AR0105-10); PMSF (Sigma,10837091001);一抗稀释液(广州励德生物,PN1810);分子量Marker #26616(Thermo,26616);ECL化学发光检测试剂盒(Tanon,180-5001);Fibronectin抗体(Abcam,ab45688);Collagen I抗体(武汉博士德,BA0325);α-SMA抗体(武汉博士德,BM0002);Alexa Fluor 488-conjugated anti-rabbit IgG (Proteintech,SA00006-2); Alexa Fluor 594-conjugated anti-rabbit IgG (Proteintech,SA00006-4); Alexa Fluor 488-conjugated anti-mouse IgG (Proteintech,SA00006-1);Alexa Fluor 594-conjugated anti-mouse IgG (Proteintech,SA00006-3); Smad2/3抗体(Abcam,ab202445); phospho-Smad3抗体(Abcam,ab118825);TGF-β1抗体(Abcam, ab215715)。
1.2 方法 1.2.1 原代心肌成纤维细胞的分离在无菌条件下开胸取SD大鼠心脏,浸于预冷PBS溶液中,重复冲洗干净血污后置于干净玻璃皿中,修剪多余组织后将心脏对称剪碎至1~3 mm3小块,转移至15 mL离心管中用PBS再次洗涤,弃PBS加入0.1%Ⅱ型胶原酶(0.22 μm微孔滤膜滤过除菌)在37 ℃恒温水浴消化30 min,然后用0.25%胰蛋白酶消化3次每次5 min,接着重复用Ⅱ型胶原酶消化2~3次至消化完全。吸取上清至预冷的15 mL离心管中(提前加入含有胎牛血清的DMEM培养基),终止消化。细胞悬液1 000转离心10 min,弃上清后重悬细胞悬液,置于37 ℃、5% CO2孵育箱中孵育60 min,差速贴壁法弃去未贴壁细胞,重新加入含10%胎牛血清的DMEM培养基。取传代2~4代的心肌成纤维细胞,按实验需求进行不同处理。
1.2.2 免疫印迹检测(Western blot)细胞总蛋白提取:心肌成纤维细胞经传代、加药处理后,弃培养基用PBS洗涤干净加适量RIPA裂解液,在冰上将细胞全部刮下,转移至提前预冷1.5 mL离心管中冰上孵育30 min,隔5 min涡旋一次,使细胞充分裂解。得到的细胞裂解液离心15 min (4 ℃、12 000×g),取蛋白上清定量、分装、变性制成样品;组织总蛋白提取:取一定质量的心脏组织剪碎、用PBS洗涤干净后离心弃上清,加入适量RIPA裂解液重悬,冰上充分超声均匀,然后离心15 min (4 ℃、12 000×g),取蛋白上清定量、分装、变性制成样品,然后用适宜浓度的SDS-PAGE凝胶电泳分离,经电泳,电转,5%脱脂牛奶封闭60 min,一抗孵育过夜(4 ℃过夜),二抗室温孵育60 min,然后显影。
1.2.3实验小鼠随机分为对照组和模型组,每组各6只。模型组小鼠皮下注射Ang Ⅱ(2.5 mg·kg-1·d-1),持续4周,对照组给予相同体积生理盐水。
1.2.4 超声心动检测用异氟烷经小动物麻醉机将C57BL/6小鼠麻醉,剔除胸部毛发并用蒸馏水洗干净避免损伤探头,将其四肢固定在于含传感器的恒温板上,用Vevo 2000超声心动仪检测C57BL/6小鼠的各项心功能指标。
1.2.5 免疫荧光(immunofluorescence,IF)心肌成纤维细胞种于激光共聚焦小皿中,细胞结束处理后,弃去培养基,用1 mL PBS洗2次;加200 μL 4%多聚甲醛室温固定30 min,加入1 mL PBS,置于摇床上洗2次(每次5 min);加入200 μL 1% Triton(PBS配制)溶液,室温透膜处理10 min,加入1 mL PBS,置于摇床上洗2次(每次5 min);用150 μL山羊血清室温封闭30 min,弃去山羊血清(免洗)加入1 ∶100稀释的一抗,4 ℃孵育过夜;加入1 mL PBS洗去未结合的抗体,5 min×3次;加150 μL Alexa Flour 594兔荧光二抗,避光孵育1 h(1 ∶200,山羊血清稀释),倾去二抗,加入PBS,避光,置脱色摇床上洗脱,5 min×3次;加入100 μL DAPI(1 ∶5 000,PBS稀释)染核10 min,加入1 mL PBS,置摇床上洗脱,5 min×3次。在超高分辨率激光扫描显微镜下进行拍摄。
1.2.6 统计学方法采用GraphPad Prism 8.0.2统计学软件,所有数据均表示为x±s,两组间比较采用t检验,各组之间的差异采用One-way ANOVA分析。
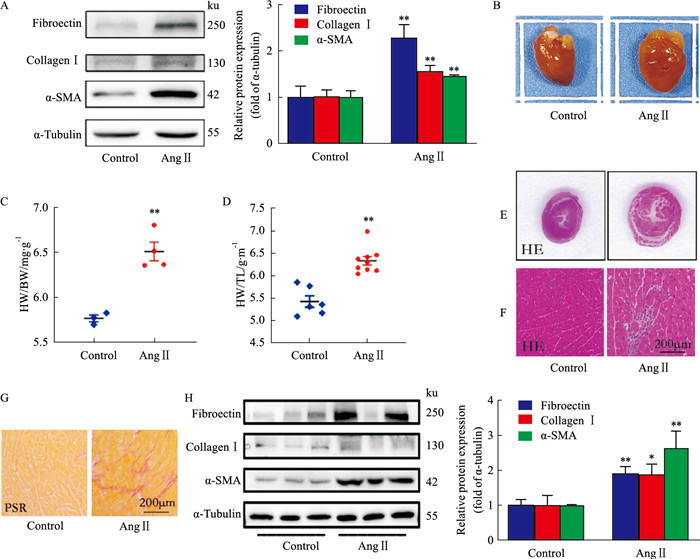
2 结果 2.1 建立AngⅡ诱导的心肌成纤维细胞纤维化模型使用AngⅡ(10-7 mol·L-1)诱导心肌成纤维细胞纤维化模型,每隔12 h补加一次, 孵育36 h。如Fig 1A所示,AngⅡ处理后模型组纤维化相关指标Fibronectin、Collagen Ⅰ和α-SMA呈现明显上调的趋势,提示成功构建AngⅡ诱导的心肌成纤维细胞纤维化模型。
|
| Fig 1 Ang Ⅱ-induced cardiac fibrosis in vitro and in vivo(x±s, n=3 or 6) A: Cardiac fibroblasts were incubated with Ang Ⅱ (10-7 mol·L-1) for the indicated durations; B: C57BL/6 mice were submitted to the subcutaneous injection of angiotensin Ⅱ; C, D: Postmortem measurements of HW/BW and HW/TL were performed; E, F: HE stained transections of the left ventricle were shown; G: Transverse views of left ventricle with PSR staining were shown. *P < 0.05, **P < 0.01 vs control group. |
在C57BL/6小鼠皮下注射AngⅡ(2.5 mg·kg-1)诱导心肌纤维化动物模型,每天给药连续4周,对照组给予相同体积的生理盐水。实验结果表明:与对照组相比,AngⅡ处理后,小鼠心脏体积明显增大(Fig 1B),心脏系数即心质量体质量比(HW/BW)、心质量胫骨长比(HW/TL)明显上调(Fig 1C-D)。为进一步观察小鼠心脏的改变,心脏组织切片HE染色(Fig 1E, F)结果显示,AngⅡ处理引起小鼠心肌细胞排列紊乱,心肌细胞体积增大,胞质出现空泡化,提示心脏发生病变。采用PSR染色(Fig 1G)观察心肌细胞纤维化情况,结果显示,AngⅡ组小鼠心脏细胞发生了明显的胶原纤维化。进一步检测组织蛋白分子生物学指标,Western blot结果显示,AngⅡ处理后,小鼠心脏组织中Fibronectin、Collagen Ⅰ和α-SMA明显上调(Fig 1H)。以上结果提示,心肌纤维化动物模型成功建立。
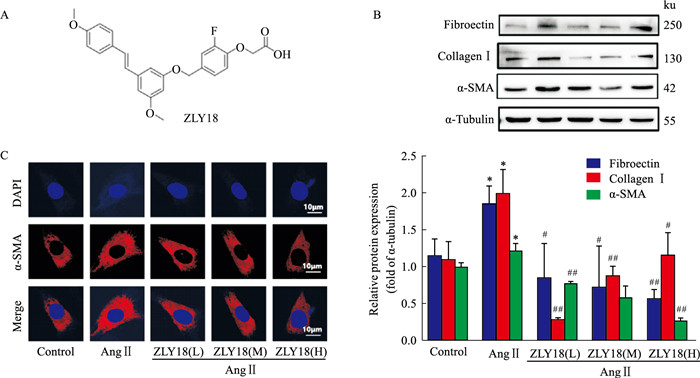
2.3 ZLY18对AngⅡ诱导的心肌成纤维细胞纤维化的影响化合物ZLY18的结构式如Fig 2A所示,在心肌成纤维细胞中,以Ang Ⅱ(10-7 mol·L-1)诱导心肌成纤维细胞纤维化,每隔12 h补加一次AngⅡ,孵育36 h,模拟心肌纤维化模型。药物组分为ZLY18(L)组、ZLY18(M)组和ZLY18(H)组,分别给予不同剂量的ZLY18 1 μmol·L-1、2 μmol·L-1和5 μmol·L-1,孵育24 h,研究其对心肌纤维化的作用。Western blot结果显示,与对照组相比,给予不同剂量ZLY18均能改善由Ang Ⅱ所诱导的纤维化相关标志蛋白Fibronectin、Collagen Ⅰ和α-SMA的上调,并且改善作用具有一定的剂量依赖性(Fig 2B)。进一步免疫荧光实验结果表明与Western blot结果具有相同趋势(Fig 2C)。以上结果提示,ZLY18在细胞水平上能够明显改善由Ang Ⅱ诱导的心肌成纤维细胞纤维化。
|
| Fig 2 Effect of ZLY18 on Ang Ⅱ-induced cardiac fibroblasts fibrosis(x±s, n=3) A: Chemical structural formula of ZLY18; B: The protein expression of Fibronectin, Collagen Ⅰ and α-SMA; C: The protein expression of α-SMA in cardiac fibroblasts. *P < 0.05 vs Control group, #P < 0.05, ##P < 0.01 vs Ang Ⅱ group. |
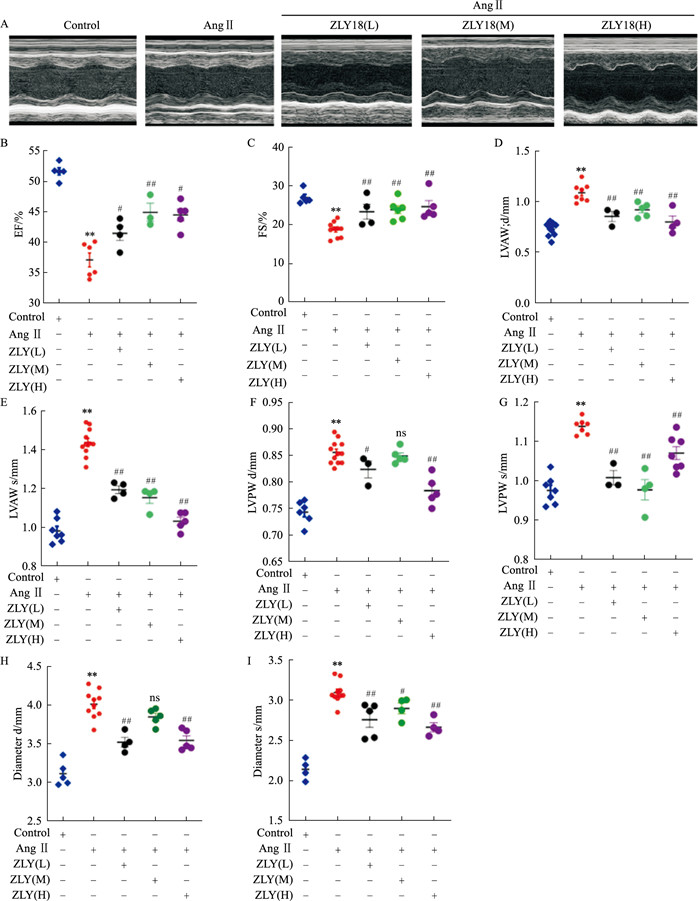
首先,小鼠超声心动图结果如Fig 3A所示,进一步对超声心动结果分析,如Fig 3B-I所示,与对照组相比,Ang Ⅱ组小鼠超声心动射血分数(ejection fraction, EF)、左室短轴缩短率(fraction shortening, FS)等参数明显下降,左室前壁厚度(LVAW)、左室后壁厚度(LVPW)、左室内径(Diameter)等超声心动参数均明显增高,说明Ang Ⅱ组的小鼠心功能下降,造模成功。而ZLY18处理后EF、FS明显上调,LVAW、LVPW、Diameter明显下调,并且具有一定的剂量依赖性。提示药物组均能够有效的改善由AngⅡ诱导的EF、FS下降,并一定程度上下调由AngⅡ诱导的LVAW、LVPW和Diameter的增高。
|
| Fig 3 The echocardiography results of C57BL/6 mice treated with ZLY18(x±s, n=10) A: Echocardiography parameters were presented; B: Ejection fraction was detected and calculated; C: Fractional shortening was calculated; D, E: Left ventricular anterior wall thickness was detected and calculated; F, G: Left ventricle posterior wall thickness was detected and calculated; H, I: Both left ventricular internal dimensions at end-diastole and at end-systole were detected and calculated. **P < 0.01 vs control group, #P < 0.05, ##P < 0.01 vs Ang Ⅱ group. |
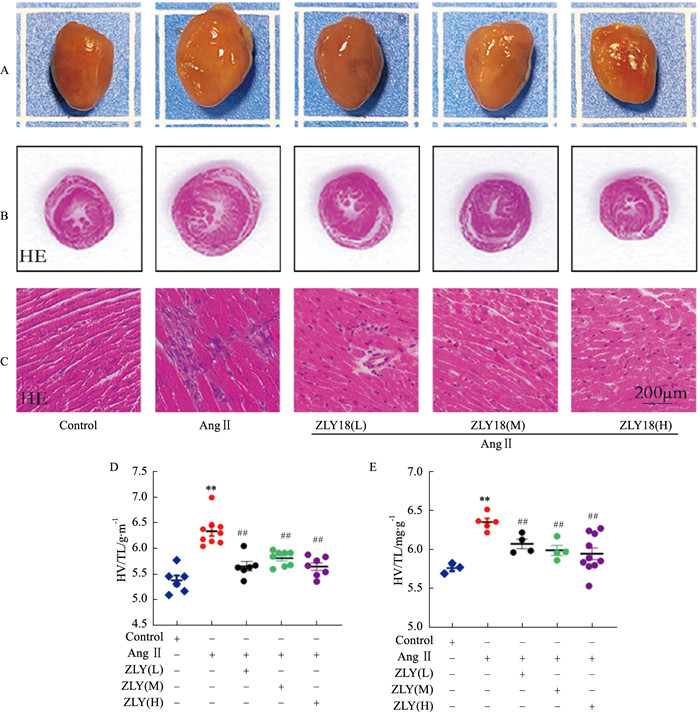
进一步观察大鼠心脏的改变,心肌组织形态学结果显示(Fig 4A-C),与对照组相比,AngⅡ组小鼠心脏体积明显增大,心肌细胞排列紊乱,心肌细胞体积增大,胞质出现空泡化,提示心脏发生病变,而化合物ZLY18处理均能够明显的改善AngⅡ诱导的心肌细胞排列紊乱,心肌细胞体积增大,胞质出现空泡。此外,与对照组相比,AngⅡ组HW/BW、HW/TL明显上调,表明小鼠心功能异常,而ZLY18处理均能够明显的改善AngⅡ引起的HW/BW、HW/TL上调(Fig 4D,E)。
|
| Fig 4 Effect of ZLY18 on Ang Ⅱ-induced cardiac fibrosis model(x±s, n=10) A: The control group animals received saline; B, C: HE-stained transections of the left ventricle were shown; D, E: Postmortem measurements of HW/BW and HW/TL were performed. **P < 0.01 vs Control group; ##P < 0.01 vs Ang Ⅱ group. |
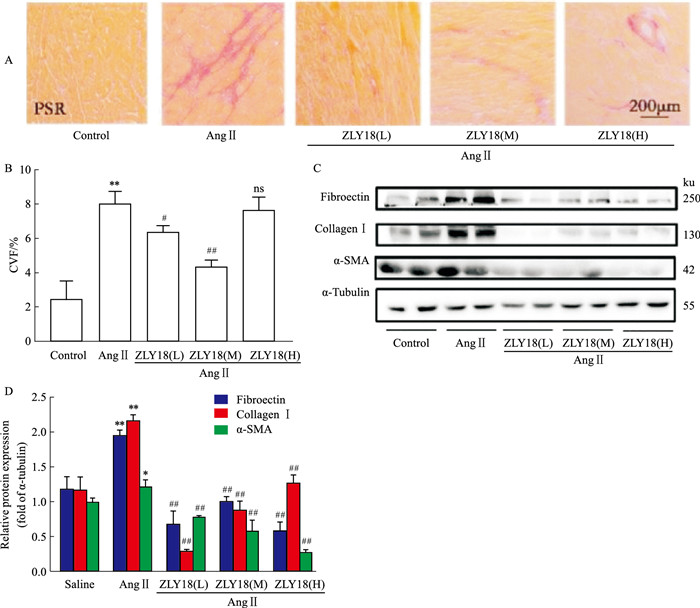
心脏发生纤维化病变往往伴随着大量ECM沉积,它主要由胶原蛋白、糖蛋白、蛋白聚糖以及某些细胞因子、MMPs等组成。如Fig 5A-B所示,与对照组相比,Ang Ⅱ组小鼠胶原水平明显增加,药物组处理后小鼠胶原水平均明显减少。进一步Western blot结果表明,AngⅡ处理后,C57BL/6小鼠心脏组织中Fibronectin、Collagen Ⅰ和α-SMA明显上调,而给予不同剂量ZLY18均能下调由Ang Ⅱ诱导的纤维化标志蛋白的表达,具有一定的剂量依赖性(Fig 5C-D)。以上结果表明,ZLY18不同剂量均能够发挥良好的抗纤维化作用。
|
| Fig 5 Effect of related markers on Ang Ⅱ-induced cardiac fibrosis model treated by ZLY18(x±s, n=6) A, B: Transverse views of left ventricle with PSR staining and changes of CVF in mice were shown; C, D: The protein of Fibronectin, Collagen and α-SMA were detected by Western blot. *P < 0.05, **P < 0.01 vs Control group; #P < 0.05, ##P < 0.01 vs Ang Ⅱ group. |
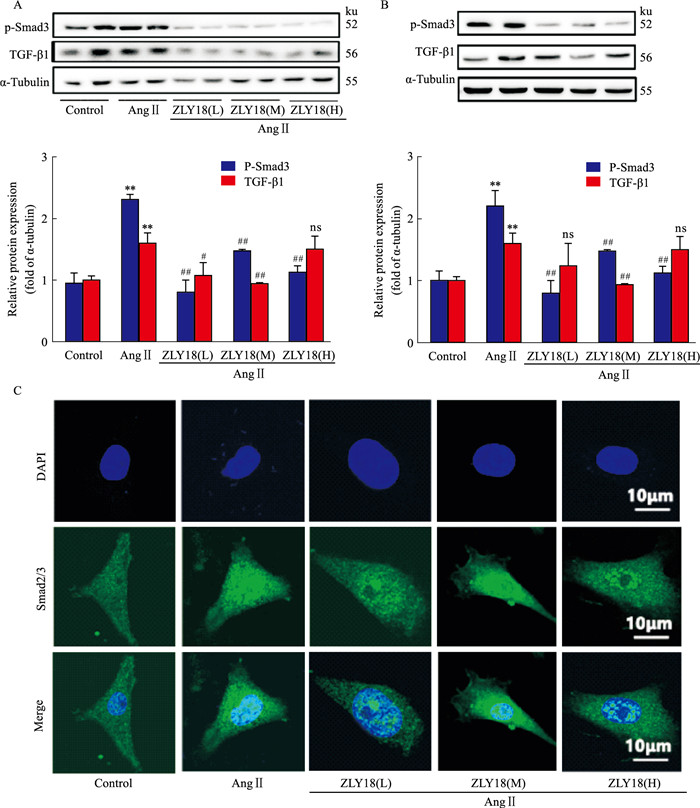
如Fig 6A所示,在AngⅡ刺激下,TGF-β1、Smad3的磷酸化水平升高;相比AngⅡ组,给予不同剂量ZLY18下调了TGF-β1、Smad3的磷酸化水平。如Fig 6B所示,ZLY18能够明显抑制AngⅡ诱导的TGF-β1、Smad3磷酸化水平增加。以上结果表明,ZLY18在体内、外实验中均能抑制AngⅡ介导TGF-β1/Smads通路的激活。
|
| Fig 6 ZLY18 involved in inhibition of Smad3 phosphorylation and nucleus transfer of Smad2/3 by ZLY18(x±s, n=3) A, B: The protein level of p-Smad3 was analyzed by Western blot in vivo and in vitro; C: The nucleus transfer of Smad2/3 in primary myocardial fibroblasts was detected by IF assay. **P < 0.01 vs Control group; #P < 0.05, ##P < 0.01 vs Ang Ⅱ group. |
磷酸化的Smad2/3可与Smad4形成复合物,转位入核进而调节下游纤维化基因的表达[9],同时给予AngⅡ、ZLY18共处理,处理完成后,通过IF实验检测Smad2/3在胞质、胞核分布情况。Fig 6C显示,正常组Smad2/3在胞核胞质中分布均匀,在AngⅡ刺激下,Smad2/3在细胞核的分布增加,相比AngⅡ组,ZLY18低中高剂量处理均能减少Smad2/3在胞核的分布。以上结果提示:ZLY18通过下调TGF-β1水平,减少Smad2/3入核来抑制AngⅡ介导TGF-β1/Smads通路的激活。
3 讨论心肌纤维化广泛存在于各类心脏疾病的发生发展过程中,其具体发病机制仍需要进一步阐明。在不同心脏疾病中,心肌纤维化所发挥的作用和具体机制各不相同,心肌纤维化的发生发展伴随着心功能的下降,最终发展为难治性心衰,成为心脏病患者死亡的主要原因之一[10], 因此,预防与延缓心肌纤维化已是目前治疗各种心脏疾病的重要策略。TGF-β1/Smads信号通路激活在心肌纤维化中扮演重要角色,AngⅡ通过调节TGF-β1/Smads信号通路[11]、PPAR γ信号通路[12]等多途径激活心肌纤维化的发生发展。
肾素-血管紧张素-醛固酮系统(RAAS)在血容量、血压和钠稳态的生理调节中具有重要的作用[13]。鉴于这一关键作用,RAAS信号传导也与高血压、心力衰竭、细胞外基质重塑和纤维化等几种重要临床疾病的发病机制密切相关[14]。AngⅡ是一种多功能分子,在几乎所有身体组织中以内分泌/自分泌/旁分泌的方式起作用,与多种心脏疾病的发生发展密切相关[15]。心肌细胞损伤后,心脏局部RAAS成分明显升高,AngⅡ增强心肌成纤维细胞与各种ECM蛋白的结合,促进纤维化相关蛋白的表达,从而导致心肌纤维化[16]。本研究采用AngⅡ建立心肌纤维化体内体外模型,给予化合物ZLY18处理后,实验结果提示ZLY18可能通过抑制RAAS的异常激活,改善由Ang Ⅱ诱导的心肌纤维化,其具体机制仍需要进一步实验证实。
TGF-β1是调节心肌组织纤维化的关键介质之一,且主要通过激活其下游受体Smads信号导致纤维化的发生发展。大量研究表明,TGF-β1通过直接激活Smads信号传导来引发促纤维化基因过表达。TGF-β1/Smads通路的失常是导致组织纤维化的重要致病机制,而Smad2/3和Smad3则是促进TGF-β1介导的组织纤维化的两个主要下游调节因子[17]。在病理条件下TGF-β1大量表达并激活TGF-β1/Smads通路,TGF-β1通过与转化生长因子β受体II(TGF-β RII)相互作用时被激活,然后TGF-βRII磷酸化转化生长因子β受体I(TGF-β RI),其又磷酸化细胞质介质Smad2/3和Smad3,并且与Smad4形成复合物,易位到细胞核中调节基因转录,从而促进心肌纤维化的发生发展[18]。我们的实验发现,在Ang Ⅱ诱导的心肌纤维化模型下,化合物ZLY18能够明显下调TGF-β1、Smad3磷酸化水平和Smad2/3入核增加,抑制了TGF-β1/Smads信号通路异常激活,提示化合物ZLY18可以明显改善由Ang Ⅱ诱导的心肌纤维化。
此外,我们前期研究发现,ZLY18通过激活FFA1/PPAR-α/γ/δ信号通路在高脂、高糖饮食联合CCl4诱导的非酒精性脂肪肝模型中明显抑制了纤维化相关基因的表达,与抗纤维化剂吡非尼酮相比,ZLY18对肝纤维化导致的炎症细胞浸润、肝细胞坏死和静脉间胶原桥形成减弱作用优于吡非尼酮[10]。因此,我们猜想化合物ZLY18发挥抗纤维化作用是否与FFA1/PPAR-α/γ/δ信号通路激活有关?这种可能性需要进一步实验证实。
综上所述,ZLY18可以通过抑制TGF-β1/Smads信号通路来改善由Ang Ⅱ诱导的心肌纤维化。但是,化合物ZLY18对Ang Ⅱ诱导的心肌纤维化的保护作用是否优于吡非尼酮尚不清楚,其抑制RAAS的异常激活仍须进一步探究。
| [1] |
González A, Schelbert EB, Díez J, et al. Myocardial interstitial fibrosis in heartfailure: Biological and translational terspectives[J]. J Am Coll Cardiol, 2018, 71(15): 1696-706. doi:10.1016/j.jacc.2018.02.021 |
| [2] |
Zhao Y, Gu T X, Zhang G W, et al. Losartan affects the substrate for atrial fibrillation maintenance in a rabbit model[J]. Cardiovasc Pathol, 2013, 22(5): 383-8. doi:10.1016/j.carpath.2013.02.005 |
| [3] |
Scott P A, Rosengarten J A, Curzen N P, et al. Late gadolinium enhancement cardiac magnetic resonance imaging for the prediction of ventricular tachyarrhythmic events: A meta-analysis[J]. Eur J Heart Fail, 2013, 15(9): 1019. doi:10.1093/eurjhf/hft053 |
| [4] |
Dobaczewski M, Chen W, Frangogiannis NG. Transforming growth factor (TGF)-beta signaling in cardiac remodeling[J]. J Mol Cell Cardiol, 2011, 51(4): 600-6. doi:10.1016/j.yjmcc.2010.10.033 |
| [5] |
Frangogiannis N G. The role of transforming growth factor (TGF)-beta in the infarcted myocardium[J]. J Thorac Dis, 2017, 9(Suppl 1): S52-63. |
| [6] |
Okayama K, Azuma J, Dosaka N, et al. Hepatocyte growth factor reduces cardiac fibrosis by inhibiting endothelial-mesenchymal transition[J]. Hypertension, 2012, 59(5): 958-65. doi:10.1161/HYPERTENSIONAHA.111.183905 |
| [7] |
Hanna A, Frangogiannis N G. The role of the TGF-beta superfamily in myocardial infarction[J]. Front Cardiovasc Med, 2019, 6: 140. doi:10.3389/fcvm.2019.00140 |
| [8] |
Zhou Z, Ren Q, Jiao S, et al. Discovery of new and highly effective quadruple FFA1 and PPARα/γ/δ agonists as potential anti-fatty liver agents[J]. Eur J Med Chem, 2022, 229: 114061. doi:10.1016/j.ejmech.2021.114061 |
| [9] |
沈豪, 郭霜, 刘秀芬, 等. TGF-β/Smads信号通路在姜黄素改善糖尿病大鼠心肌纤维化中的作用[J]. 中国药理学通报, 2018, 34(4): 522-7. Shen H, Guo S, Liu X F, et al. Curcumin ameliorates myocardial fibrosis via TGF-β/Smads signaling pathway in diabetic rats[J]. Chin Pharmacol Bull, 2018, 34(4): 522-7. doi:10.3969/j.issn.1001-1978.2018.04.017 |
| [10] |
Nguyen T P, Qu Z, Weiss J N. Cardiac fibrosis and arrhythmogenesis: The road to repair is paved with perils[J]. J Mol Cell Cardiol, 2014, 70: 83-91. doi:10.1016/j.yjmcc.2013.10.018 |
| [11] |
Cui L, Wang Y, Yu R, et al. Jia-Shen decoction-medicated serum inhibits angiotensin-Ⅱ induced cardiac fibroblast proliferation via the TGF-beta1/Smad signaling pathway[J]. Mol Med Rep, 2016, 14(2): 1610-6. doi:10.3892/mmr.2016.5405 |
| [12] |
Nair A R, Agbor L N, Mukohda M, et al. Interference with endothelial PPAR (peroxisome proliferator-activated receptor) -gamma causes accelerated cerebral vascular dysfunction in response to endogenous renin-angiotensin system activation[J]. Hypertension, 2018, 72(5): 1227-35. doi:10.1161/HYPERTENSIONAHA.118.11857 |
| [13] |
Lijnen P, Petrov V. Induction of cardiac fibrosis by aldosterone[J]. J Mol Cell Cardiol, 2000, 32(6): 865-79. doi:10.1006/jmcc.2000.1129 |
| [14] |
Gan W, Ren J, Li T, et al. The SGK1 inhibitor EMD638683, prevents Angiotensin Ⅱ-induced cardiac inflammation and fibrosis by blocking NLRP3 inflammasome activation[J]. Biochim Biophys Acta Mol Basis Dis, 2018, 1864(1): 1-10. doi:10.1016/j.bbadis.2017.10.001 |
| [15] |
Wang N P, Erskine J, Zhang W W, et al. Recruitment of macrophages from the spleen contributes to myocardial fibrosis and hypertension induced by angiotensin Ⅱ[J]. J Renin Angiotensin Aldosterone Syst, 2017, 18(2): 1470320317706653. |
| [16] |
Liu Q, Zhang Q, Wang K, et al. Renal denervation findings on cardiac and renal fibrosis in rats with isoproterenol induced cardiomyopathy[J]. Sci Rep, 2015, 5: 18582. doi:10.1038/srep18582 |
| [17] |
Hu H H, Chen D Q, Wang Y N, et al. New insights into TGF-β/Smad signaling in tissue fibrosis[J]. Chem Biol Interac, 2018, 292: 76-83. doi:10.1016/j.cbi.2018.07.008 |
| [18] |
Chen L, Yang T, Lu D W, et al. Central role of dysregulation of TGF-β/Smad in CKD progression and potential targets of its treatment[J]. Biomed Pharmacother, 2018, 101: 670-81. doi:10.1016/j.biopha.2018.02.090 |