 2026, Vol. 56


2. 海南热带海洋学院崖州湾创新研究院, 海南 三亚 572000;
3. 长岛海洋生态文明综合实验区海洋经济促进局,山东 烟台 265800
包括二氧化碳(CO2)、甲烷(CH4)和氧化亚氮(N2O)在内的温室气体大量排放导致全球温室效应持续加剧[1]。CO2是第一大温室气体,2023年中国CO2排放量达到11.7 Gt。占中国温室气体总排放量的81.8%[2]。CH4和N2O的排放量分别为64.5和2.9 Tg[2],虽远低于CO2,但CH4和N2O在百年内全球增温潜势大约是CO2的34倍和298倍[2-3]。近海生态系统作为陆地、潮汐湿地、河口、沉积物、大气和开放海域之间的交换枢纽,在全球元素循环中发挥着重要作用[4-6],是温室气体排放关注的重点区域。
近年来,化肥施用、土壤侵蚀与污水排放等人为活动导致大量氮、磷等营养元素输入近海区域,显著改变了沿岸水生生态系统的营养结构[7-8],加剧了水体富营养化程度,进而极大促进了温室气体的产生与排放[9-10]。研究表明,1975至2020年间,河口温室气体排放导致沿海植被(包括红树林、盐沼和海草床)对CO2当量的吸收能力下降了23%~27%。在全球范围内,沿海生态系统排放的CH4和N2O,抵消了其CO2吸收汇的9%~20%[11]。
在水生生态系统中,沉积物是多种微生物反应的重要场所,也是温室气体的关键来源[12-13],CO2浓度受光合作用与呼吸作用的共同调控。富营养化引起的高营养盐水平促进初级生产,加速有机质沉降与矿化过程,并增强沉积物中的微生物呼吸,从而导致CO2释放量增加[14]。CH4主要来源于沉积物中古菌和细菌对有机物的厌氧降解[15-16],水华爆发后形成的低氧环境会抑制CH4的氧化过程,进而促进CH4的积累[1]。好氧条件下的硝化作用和厌氧条件下的反硝化作用是N2O产生的两个关键微生物过程[17],富营养化水体中过量的氮为微生物提供了充足底物[18]。因此,高营养盐负荷的沿海生态系统被认为是温室气体排放的热点区域,进一步加剧了温室效应。防治富营养化以降低水体温室气体排放,已成为缓解全球气候变化的一个重要议题。
根据中国渔业统计年鉴的数据,2023年中国牡蛎产量达667万t,占贝类养殖总产量的40.5%[19],牡蛎养殖不仅是重要的经济资源,其作为生态系统工程师,也在生态系统中发挥着关键的生态系统服务功能[20]。研究表明,滤食性贝类能通过加速营养盐循环、提高营养盐可利用性,促进浮游植物生长并增强初级生产力,这一过程被称为“上行效应”。该效应进一步促进了水体的生物沉降作用,增加水体中的有机质向沉积物转移,从而增强了局部生物地球化学循环[21-23]。而在高营养负荷的水体中,牡蛎通过滤食直接移除水体中的颗粒有机质,减少了悬浮有机物的积累,形成“下行效应”[21],从而在一定程度上降低水体有机负荷。基于上述特性,贝类养殖及其在生态修复方面的应用日益受到重视[23-24]。
然而,目前关于利用滤食性贝类调控富营养化并减少沉积物-水界面温室气体释放的研究仍较为有限。因此,本研究采用中尺度陆基围隔实验系统,探讨在高营养盐输入条件下,不同密度的长牡蛎(Crassostrea gigas)对沉积物-水界面温室气体通量的影响,旨在评估滤食性贝类在生物治理方面的潜力,并为抑制富营养化水体的温室气体排放提供新的思路。
1 材料与方法 1.1 实验设计本研究于2024年10月初至2024年11月底开展,实验周期为56 d。实验在山东省潍坊市德明水产养殖有限公司进行,实验池塘位于山东省潍坊市下营镇(37.077°N, 119.488°E),池塘占地面积2 hm2。在海水池塘中搭建15个10 m×10 m的陆基围隔养殖系统,围隔具体信息参考文献[25]。围隔海水引自潍河,水深维持在1.8 m左右。在实验期间,围隔与池塘之间基本无水体交换,仅补充少量海水以补偿蒸发和渗漏损失。为防止生物附着,每隔一天清洁一次围隔的内壁。根据施肥与长牡蛎的放养情况设置5个处理组,分别为不施肥不养贝的对照组(C)、养贝不施肥组(S)、施肥不养贝组(F)、施肥养贝组(FS)和施肥高密度养贝组(FSP),具体设置情况见表 1,每组设置三个重复。施肥组每个采样周期以撒播的方式施肥一次,施肥依据1 mg·L-1的氮(氯化铵)以及0.25 mg·L-1的磷(磷酸二氢钾)的方案进行[25]。长牡蛎购置于商业牡蛎养殖场(山东省荣成市),在实验开始前将长牡蛎暂养于养殖池塘驯化2周,实验期间贝类采用吊笼养殖,养殖密度设置参考文献[25]。
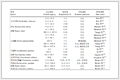
|
表 1 各组实验设置 Table 1 Experimental settings for each group |
分别于实验开始后第0(实验开始前)、10、20、30、40、56天采集样品。采用土壤氧化还原电位剖面探头(ORP-30-1-BNC,SWAP Instruments B V.,the Netherlands)原位测量0~2 cm深度处的沉积物温度(T)和氧化还原电位(Oxidation-reduction potential,ORP)。使用活塞式柱状采样器(JC-801A,Wuhan Zhongke Yantu,China)采集表层2 cm处的沉积物样品,装满于5个50 mL的离心管中,另外部分样品分装于环刀铝盒中,并置于-20 ℃冰箱中保存,以用于后续分析。
将一个装有沉积物的50 mL离心管和已称重的环刀铝盒在-40 ℃的真空冷冻干燥机(Alpha 1-4 LDplus,CHRIST,Germany)中干燥48 h至恒重,研磨后过200目筛网,保存于聚乙烯塑封袋中。将离心管中冷冻干燥后的沉积物样品与无CO2的超纯水按照1∶2.5的土水体积重量比混合后,用便携式多参数pH计测定(QH40d,HACH,USA)pH[26]。将环刀铝盒干燥前后的重量进行对比,测得含水率。采用比重瓶法测定沉积物比重[27]。沉积物孔隙度根据比重和容重计算可得,详见公式(1),其中
| $ \varnothing=\left(1-\frac{\gamma}{\varepsilon}\right) \times 100 \% 。$ | (1) |
使用丙酮法测定沉积物叶绿素a含量[28]。将装有沉积物的50 mL离心管进行离心,得到的间隙水转移至装有0.45 μm孔径的聚醚砜水相滤头的10 mL针筒中,过滤后使用N-(1-萘基)-乙二胺二盐酸盐分光光度方法测定亚硝酸盐(NO2--N)浓度、用吲哚酚蓝比色分光光度法测定总氨氮(Total ammonia nitrogen,TAN)浓度、用氯化钒还原分光光度法测量硝酸盐(NO3--N)的浓度[29]。
在实验开始时,将圆柱形的沉积物捕集器(直径21.4 cm,高度21 cm)放置在每个围隔底部以收集沉降物,实验结束时,回收沉积物捕集器。使用元素分析仪(FlashSmart,Thermo Fisher Scientific,USA)分析沉降物总碳和总氮含量,以确定实验期间各组的沉降情况。
1.2.2 上覆水和沉积物间隙水溶解温室气体浓度现场使用YSI水质分析仪(YSI-EC300A,Xylem Analytics,USA)测定上覆水的温度和盐度。将接有长橡胶管的200 mL注射器伸至距水底约2 cm处,抽取100 mL上覆水,随后立即向注射器中加入100 mL N2(纯度99.99%),旋紧三通阀并剧烈摇晃注射器20 min,置于避光恒温条件下静置15 min,以达到气-液平衡,随后把气体通过高密度吸水棉,去除气体中的水蒸气之后注入气袋。气体样品中温室气体浓度通过气相色谱仪(Agilent8890,Agilent,USA)测得,其中CO2、CH4、N2O分别由TCD、FID和ECD监测器测得,并根据公式(2)计算原位上覆水温室气体浓度[26, 30]:
| $ C_L=C_G \cdot\left(K_0 \cdot \mathrm{R} \cdot T+\frac{V_G}{V_L}\right) \text { 。} $ | (2) |
式中:CL为上覆水溶解气体浓度(nmol·L-1);CG为顶空气体中对应温室气体浓度(nmol·L-1),通过公式(3)计算得到;K0为平衡常数(mol·L-1·atm-1);R为理想气体常数,值为0.082 057 L·atm·mol-1·K-1;T为顶空平衡时水样的温度(K);VG为顶空平衡后注射器中气体的体积(L),为0.1 L;VL为顶空平衡后,注射器中水样的体积(L),为0.1 L。
| $ C_G=\frac{P \cdot C_a}{1013.25 \cdot R \cdot T} 。$ | (3) |
式中: P为实验室环境气压(hPa),由气压计测得;Ca为气相色谱仪测的气体浓度(nmol·mol-1)。
三种气体的K0分别由下面三个公式进行计算。
| $ \begin{aligned} & \ln K_{0 \mathrm{CO}_2}=-58.0931+90.5069 \cdot \frac{100}{T}+ \\ & 22.294 \cdot \ln \left(\frac{T}{100}\right)+S \cdot[0.027766- \\ & 0.025888 \cdot \frac{100}{T}-0.005078 \cdot\left(\frac{100}{T}\right)^2 ; \end{aligned} $ | (4) |
| $ \begin{gathered} \ln K_{0 \mathrm{CH}_4}=-68.8862+101.4956 \cdot \frac{100}{T}+ \\ 28.7314 \cdot \ln \left(\frac{T}{100}\right)+S \cdot[-0.076146+ \\ 0.04397 \cdot \frac{100}{T}-0.006872 \cdot\left(\frac{100}{T}\right)^2 ; \end{gathered} $ | (5) |
| $ \begin{aligned} & \ln K_{0 \mathrm{~N}_2 \mathrm{O}}=-62.7062+97.3066 \cdot \frac{100}{T}+ \\ & 24.1406 \cdot \ln \left(\frac{T}{100}\right)+S \cdot[-0.05842+ \\ & 0.33193 \cdot \frac{100}{T}-0.0051212 \cdot\left(\frac{100}{T}\right)^2 . \end{aligned} $ | (6) |
式中S为上覆水的盐度。
收集到沉积物样品后,用50 mL的注射器(已提前切除顶端)装填表层0~2 cm的沉积物样品共80 mL,随后转移到250 mL的硼硅酸盐血清瓶中,立即注入相应采样点的上覆水100 mL。瓶子迅速用橡胶塞密封,形成顶空后立即剧烈摇晃7 min,随后静置15 min。15 min后,用相应体积的上覆水置换出顶空气体,收集到气袋中。间隙水溶解温室气体浓度(Cs)是根据顶空气体温室气体浓度、加入的上覆水中的温室气体浓度空白值以及沉积物间隙水含量算得[31],具体方法见公式(7)。
| $ C_s=\frac{C_a \cdot V_a+C_a \cdot R \cdot T \cdot K_0 \cdot V_k-C_k \cdot V_k}{V_s \cdot \varphi} 。$ | (7) |
式中:分子为顶空部分与泥水混合液总温室气体物质的量(mol)减去上覆水中温室气体的量(mol);分母为沉积物体积乘以孔隙度,表示沉积物间隙水含量;Ca为顶空气体中温室气体浓度(mol·L-1),由气相色谱仪测得;Va为顶空平衡后顶空气体体积,本实验为0.07 L;R为理想气体常数,值为0.082 057 L·atm·mol-1·K-1;T为顶空平衡时水样的温度(K);K0为平衡常数(mol·L-1·atm-1),通过公式(4)计算得到;Vk为加入的上覆水的体积(L),为0.1 L;Ck为上覆水中温室气体浓度(mol·L-1);Vs为加入的沉积物体积,为0.08 L;φ为沉积物孔隙度,无量纲。
1.2.3 沉积物-水界面通量计算使用菲克第一定律计算FS-W[32],具体如公式(8)所示。
| $ F_{\mathrm{S-W}}=-\varphi\left(D_S \theta^{-2}\right) \frac{\partial C}{\partial Z} 。$ | (8) |
式中:FS-W代表气体沉积物-水界面通量(mol·m-2·d-1),正值表示气体由沉积物向上覆水中释放;φ是孔隙度,无量纲;θ2是曲折度校正,计算公式为θ2=1-ln φ[25];DS是相应温度下各气体在水中的扩散系数(m2·s-1)[26];
实验开始投放牡蛎前,将分配到各养贝组(S、FS、FSP)的牡蛎数量进行清点,并称量总重,得到每个围隔投放牡蛎数量以及平均体重。实验结束后,收集所有处理组中的存活牡蛎个体,按照相同的处理方法测定其湿重。通过前后湿重计算得到实验期间各组牡蛎的相对生长率,并统计实验期间牡蛎存活率。
1.2.5 统计学分析与可视化数据分析在SPSS(IBM SPSS Statistics 26)与RStudio中(2023.06.2)进行,使用GraphPad Prism 9.1和“pheatmap”进行数据可视化。数据采用平均值±标准差表示,使用重复测量方差分析检验采样时间及其与处理的交互作用对数据的影响。使用Levene方法和Shapiro-Wilk检验数据的正态性与方差齐性,通过检验变量,使用单因素方差分析(Analysis of variance,ANOVA)进一步分析每次采样时不同组之间的差异性,若组间差异显著,使用Tukey’s HSD方法进行事后检验。使用RStudio中的“pheatmap”包计算环境与通量的Spearman相关系数,随后绘制热图。
2 结果 2.1 贝类生长情况实验期间,放养贝类的初始平均体重为(26.56±2.31) g,在养贝组(S、FS、FSP)间没有显著差异。实验结束时,S、FS和FSP组的牡蛎的存活率分别为96.17%、92.19%和94.88%,各组牡蛎均有不同程度的生长,S、FS、FSP三组的平均终末体重分别为(37.21±2.45)、(40.96±3.24)和(47.41±1.56) g。其中S和FS组的相对生长率分别为0.40±0.06和0.54±0.09,显著低于FSP组的0.78±0.12(P<0.05)。
2.2 沉积物间隙水营养盐浓度及其他理化性质采样时间及其与处理的交互作用对测定的沉积物理化指标均有显著影响(P<0.01, 见表 2)。
|
|
表 2 各指标重复测量方差分析结果 Table 2 Repeated measures ANOVA (RM-ANOVA) results for physicochemical parameters over the experimental period |
实验期间,无机氮(包括TAN、NO3--N和NO2--N)在对照组(C)与仅养贝组(S)始终维持在较低且稳定的水平(见图 1)。在施肥组(F、FS、FSP)中三种无机氮均表现出随时间同步积累(见图 1(a)—1(c)),其浓度自第10天起急剧上升,并在第20至40天达到峰值。其中,F组的无机氮积累最多,其TAN、NO3--N和NO2--N的峰值分别达到(2.21±0.09)、(2.44±0.11)和(0.11±0.01) mg·L-1,各形态无机氮的峰值浓度均显著高于放养贝类的FS与FSP组(P<0.01)。活性磷酸盐(Soluble reactive phosphorus,SRP)的变化趋势与无机氮类似(见图 1(d))。施肥组(F、FS、FSP)的SRP浓度持续增长,F组在第56天达到最高值((0.62±0.05) mg·L-1),且显著高于FS组((0.39±0.05) mg·L-1)(P<0.01)。

|
( (a) 间隙水总氨氮浓度;(b) 间隙水硝酸盐浓度;(c) 间隙水亚硝酸盐浓度;(d) 间隙水活性磷酸盐浓度。不同字母代表同一时间点组间存在差异(P<0.05)。(a) Total ammonia nitrogen concentration in interstitial water; (b) Nitrate concentration in interstitial water; (c) Nitrite concentration in interstitial water; (d) Reactive phosphate concentration in interstitial wate. Different letters represent differences between groups at the same sampling time (P < 0.05). ) 图 1 间隙水营养盐浓度 Fig. 1 Nutrient concentration in interstitial water |
实验结束时,各组(C、S、F、FS、FSP)沉降物的总碳含量分别为(2.70±0.2)%、(3.03±0.19)%、(4.20±0.33)%、(3.56±0.41)%和(3.12±0.18)%,总氮含量分别为(0.34±0.01)%、(0.38±0.02)%、(0.54±0.03)%、(0.47±0.02)%和(0.44±0.04)%。总碳和总氮都呈现出F组最高,其次是FS组、FSP组、S组的趋势,所有处理组都显著高于C组(P<0.05)。沉积物其他理化性质指标如图 2所示。沉积物pH与氧化还原电位(ORP)的变化共同指示了沉积环境氧化状态的转变(见图 2(a)、2(b))。在整个实验周期中,对照组(C)与仅养贝组(S)的沉积物pH保持相对稳定(C组为8.54±0.04;S组为8.37±0.10),ORP值始终为正值(C组为(134±7) mV;S组为(118±16) mV)。与之相反,施肥不养贝组(F)与施肥养贝组(FS)的ORP值自第30天起急剧下降,并转变为稳定的负值(第56天时,F组为(-106±3) mV;FS组为(-53±6) mV),同时伴随pH的轻微波动性升高(第56天时,F组为8.67±0.02;FS组为8.59±0.02)。FS组和FSP组ORP的下降幅度和厌氧程度均显著低于F组(P<0.01),尤其在FSP组,其ORP值在整个实验中均维持正值。

|
( (a) 沉积物pH;(b) 沉积物氧化还原电位;(c) 沉积物孔隙度及温度;(d) 沉积物叶绿素a。不同字母代表同一时间点组间存在差异(P<0.05)。(a) Sediment pH; (b) Sediment redox potential; (c) Sediment porosity; (d) Sediment chlorophyll a. Different letters represent differences between groups at the same sampling time (P < 0.05). ) 图 2 沉积物理化指标 Fig. 2 Physicochemical indicators of sedimentation |
沉积物孔隙度在各处理组中均呈增加趋势(见图 2(c)),在实验结束时,施肥组(F、FS、FSP)的孔隙度(0.64±0.01)显著高于对照组(0.56±0.02)和仅养贝组(0.60±0.01)(P<0.01)。沉积物叶绿素a浓度在施肥处理组中呈先增加后降低的趋势,其中F组在第四次采样时达到峰值(31.62 μg·g-1)。实验期间,随着气温不断降低,沉积物温度由(21.50±0.78) ℃下降到(4.50±0.27) ℃。
2.3 各气体溶存浓度以及沉积物-水界面气体通量采样时间及其与处理的交互作用对测定的沉积物-水界面气体通量均有显著影响(P<0.01,见表 3)。
|
|
表 3 气体通量重复测量方差分析结果 Table 3 Repeated measures ANOVA (RM-ANOVA) results for greenhouse gas fluxes over the experimental period |
CO2在对照组(C)与仅养贝组(S)的间隙水和上覆水浓度及沉积物-水界面通量保持相对稳定。但在施肥组(F、FS、FSP)中,CO2的各参数均表现出随时间同步上升的趋势(见图 3(a)—3(c)),自第10天开始显著增加,并在第30天达到峰值。其中,F组的积累最为显著,其间隙水浓度、上覆水浓度和沉积物-水界面通量的峰值分别达到(1 030.21±77.25) μmol·L-1、(95.00±7.13) μmol·L-1和(1 320.84±93.01) μmol·m-2·d-1,各参数值均显著高于放养贝类的FS与FSP组(P<0.01)。

|
( (a) 间隙水CO2溶存浓度;(b) 上覆水CO2溶存浓度;(c) CO2沉积物-水界面通量。不同字母代表同一时间点组间存在差异(P<0.05)。(a) CO2 interstitial water dissolved concentration; (b) CO2 overlying water dissolved concentration; (c) CO2 flux at sediment-water interface. Different letters represent differences between groups at the same sampling time (P < 0.05). ) 图 3 沉积物-水界面CO2参数 Fig. 3 CO2 parameters at sediment-water interface |
CH4的变化趋势与CO2类似(见图 4(a)—4(c))。对照组(C)与仅养贝组(S)的间隙水、上覆水浓度及沉积物-水界面通量维持在较低水平。施肥组(F、FS、FSP)间隙水和上覆水CH4溶存浓度与通量持续增长,F组在第30天达到最高值,间隙水浓度、上覆水浓度和界面通量分别为(0.92±0.07) μmol·L-1、(89.83±7.19) nmol·L-1和(1.02±0.09) μmol·m-2·d-1,且显著高于FS和FSP组(P<0.05)。FS和FSP组的各参数值虽显著低于F组(P<0.01),但仍明显高于对照组和仅养贝组。

|
( (a) 间隙水CH4溶存浓度;(b) 上覆水CH4溶存浓度;(c) CH4沉积物-水界面通量。不同字母代表同一时间点组间存在差异(P<0.05)。(a) CH4 interstitial water dissolved concentration; (b) CH4 overlying water dissolved concentration; (c) CH4 flux at sediment-water interface. Different letters represent differences between groups at the same sampling time (P < 0.05). ) 图 4 沉积物-水界面CH4参数 Fig. 4 CH4 parameters at sediment-water interface |
N2O溶存浓度以及沉积物-水界面通量在不同处理组间的差异更为明显(见图 5(a)—5(c))。对照组(C)的N2O溶存浓度及通量保持稳定,而其余处理组则呈现随时间逐渐上升的趋势。F组的N2O间隙水浓度在第30天达到峰值,为(0.49±0.04) μmol·L-1,界面通量达到(0.55±0.05) μmol·m-2·d-1,分别为C组的4.4倍和5.1倍。FS组的各参数值均显著低于F组(P<0.01),FSP组的参数值介于F组与FS组之间,但FS组显著高于S组(P<0.01)。

|
( (a) 间隙水N2O溶存浓度;(b) 上覆水N2O溶存浓度;(c) N2O沉积物-水界面通量。不同字母代表同一时间点组间存在差异(P<0.05)。(a) N2O interstitial water dissolved concentration; (b) N2O overlying water dissolved concentration; (c) N2O flux at sediment-water interface. Different letters represent differences between groups at the same sampling time (P < 0.05). ) 图 5 沉积物-水界面N2O参数 Fig. 5 N2O parameters at sediment-water interface |
三种温室气体的间隙水浓度、上覆水浓度及界面通量均与TAN、NO2--N、SRP、沉积物孔隙度及叶绿素a含量呈显著正相关(P<0.05,见图 6),并与氧化还原电位和温度呈极显著负相关。三种气体对NO3--N和pH的响应不同,NO3--N与所有的CH4和N2O参数均呈显著正相关(P<0.05),但仅与CO2的上覆水浓度和通量呈正相关;此外,除上覆水CH4浓度与pH呈特有的显著负相关外(P<0.01),其余所有气体参数与pH均无显著相关性。

|
( 红色代表正相关,蓝色代表负相关,星号表示显著性水平, *:P<0.05,* *:P<0.01。Purple represents positive correlation, blue represents negative correlation, * represents significance level, *: P < 0.05, * *: P < 0.01. ) 图 6 各气体参数与环境因子相关性热图 Fig. 6 Heat map of correlation between gas parameters and environmental factors |
本研究中,仅施肥、不养贝的F组沉积物间隙水无机氮(TAN和NO2--N)和SRP的平均浓度均显著高于其他组别。水体的高营养负荷可以显著影响间隙水营养盐浓度[33],其机制主要包括以下方面:首先,通过施肥加入水体的氮磷营养盐因不能完全被水体浮游植物吸收利用,而进入到沉积物中[34];其次,营养盐添加促进了浮游植物大量增殖[35],增加了水体向沉积物的有机沉降通量,这些有机质在沉积物中经微生物分解,释放出大量营养盐[36]。同时,藻华爆发后浮游植物的大量死亡导致水体沉降通量进一步增加[37]。
长牡蛎作为滤食性贝类,能够通过多种机制调控水生生态系统的营养要素循环。本研究中,放养牡蛎的S组与对照组C组相比,其间隙水各营养盐指标均有升高趋势,这是由于牡蛎养殖活动可将水体悬浮颗粒物重新打包,显著增加水体生物沉降通量,促使有机质向沉积物输送,经微生物矿化后释放为NH4+等营养盐,并释放到间隙水中[38]。
值得关注的是,在既施肥又放养牡蛎的FS组和FSP组中,沉积物间隙水各营养盐指标并未表现出施肥和养贝的叠加积累,反而均显著低于F组。这表明牡蛎养殖能有效降低高营养负荷水体沉积物间隙水中的营养盐浓度,主要表现为牡蛎滤食作用直接、快速地移除了水体中的颗粒有机质,例如在象山湾的研究显示,养殖区浮游植物丰度和叶绿素a浓度较对照区平均降低了46.3%和28.3%[39],从而直接减少了可沉降进入沉积物的有机质通量。此外,牡蛎倾向于摄食大型链状硅藻和部分微型浮游植物,这可能促使更多微型浮游植物成为优势类群[39]。由于较小粒径浮游生物生产的有机碳更容易通过微生物环被再循环利用,而非直接形成快速沉降通量,因此这种群落粒径结构变化可能进一步降低水体有机质向沉积物的输入[40]。本研究的FS组和FSP组收集的沉降物总碳和总氮的含量显著低于F组,也证明了以上结论。沉降通量的降低减少了沉积物中耗氧微生物的分解活动,缓解了高营养负荷下沉积物的耗氧程度,而养殖活动减少的耗氧是缓解底部水体缺氧的重要原因[21]。本研究中,FSP组沉积物ORP始终保持正值,而F组和FS组分别在第30天和第40天采样时出现了由正向负的转变,也证明了这一点。
3.2 长牡蛎养殖对高营养负荷水体沉积物-水界面的温室气体通量的降低仅施肥的F组的上覆水与间隙水中三种温室气体溶存浓度及其沉积物-水界面通量均显著高于C组,表明高营养负荷显著提高了温室气体通量。实验进行20 d后,仅放养牡蛎而不施肥的S组,其各项气体指标也显著高于C组,说明牡蛎的引入同样增加了该系统沉积物-水界面的温室气体通量。已有研究表明,富营养化可通过改变沉积物生物地球化学环境,显著影响沉积物-水界面的温室气体通量[13, 41-42]。具体而言,高营养负荷导致大量有机质输入为微生物代谢提供了丰富底物,促进了好氧与厌氧呼吸过程,直接增加了CO2产生量[43]。有机质在沉积物中积累导致ORP下降,形成了适宜产甲烷古菌生长的厌氧环境,抑制了甲烷氧化过程,从而显著促进了CH4生成[44]。同时,输入的有机氮经微生物分解释放氨氮,为硝化作用提供更多的底物;硝化产物硝氮,又可作为反硝化作用的底物。由于硝化和反硝化过程是水生生态系统N2O的主要来源,该过程改变了N2O的产排路径[45]。牡蛎通过下行效应直接促进有机质向沉积物沉降[46],从而以与类似富营养化的机制增加了CO2、CH4和N2O的排放。
在施肥处理组中引入牡蛎后,FS组和FSP组各项气体指标均显著低于F组,表明在高营养负荷水体中放养牡蛎可抑制温室气体的产生。其主要原因如下:牡蛎通过滤食作用降低了浮游植物生物量,减少有机质的沉降,沉积物有机质分解耗氧降低[23, 47]。有机质沉降通量下降进一步改善了沉积物-水界面的氧化还原环境[48]。与F组和FS组不同,FSP组ORP始终为正值,降低了产甲烷和反硝化等厌氧过程的发生。此外,生物沉降减少影响了硝化与反硝化过程的底物供给,在一定程度上减少了N2O作为中间产物的积累[49-50]。
此外,尽管采用菲克第一定律计算沉积物-水界面温室气体通量的方法在研究中被广泛应用[32, 51-52],但该方法本身存在一定局限性,所计算的结果通常低于实际界面交换通量[53]。这主要是因为该方法仅反映了由浓度梯度驱动的分子扩散过程,而未包含生物扰动、对流等因素对总交换通量的贡献。然而,在本研究条件下,牡蛎采用吊笼养殖,贝类对沉积物的生物扰动作用较弱;同时,实验在中尺度陆基围隔系统中开展,水体交换极为微弱,几乎不存在显著的水流扰动。因此,该方法的适用性在本研究中得到了较好体现。
3.3 沉积物环境因子对温室气体产生的影响除了NO3--N与间隙水CO2浓度无显著相关性外,沉积物各营养盐参数(TAN、NO3--N、NO2--N和SRP)与大部分气体指标均表现出显著的正相关,表明营养盐输入在温室气体产生过程中具有核心驱动作用。同时,这些无机氮、磷营养盐可被浮游植物迅速利用,促进初级生产和有机质生成,进而改变水体物质循环过程[54-56]。叶绿素a浓度与各气体指标也呈正相关,表明浮游植物动态对温室气体产生具有重要调节作用。研究表明,以浮游植物为主要组成的有机质沉降会改变沉积物微生物群落结构,例如藻华期间蓝藻的输入,使得表层沉积物中某些产甲烷菌(如Halobacterota)丰度显著上升[26, 57]。孔隙度与各气体指标呈正相关,反映出沉积物物理结构对微生物活动和物质传输的调控作用。孔隙为微生物提供附着位点和栖息空间。通常孔隙度和渗透率与微生物生物量呈正相关[58],气体通过孔隙水进行分子扩散是基础传输方式,高孔隙度和连通性意味着更短、更顺畅的扩散路径,有利于气体释放。氧化还原电位与各气体指标呈负相关,这与产甲烷和反硝化过程对严格厌氧环境的需求相一致[44]。沉积物温度与各气体指标也呈负相关,这可能是因为随着温度下降,微生物活性降低,温室气体的产生减少[59-60]。本实验过程中,沉积物温度变化较大,但本研究采用可控制的陆基围隔实验,设置了科学的对照处理,不同实验系统都经历相同温、盐、光等物理环境和实验周期,使得不同处理组间仍具有可比性。但实验后期温度的大幅降低,导致微生物活性的普遍下降,可能在一定程度上削弱了不同处理组之间的生物学差异。
4 结论(1) 不施肥条件下,牡蛎养殖表现出一定的下行效应,增强了水体颗粒有机碳的沉降,间隙水营养盐浓度相比对照组无显著差别。而施肥条件下,沉积物间隙水中TAN、NO3--N、NO2--N和SRP的浓度显著提高,导致沉积物ORP下降,形成有利于厌氧代谢的环境。这些变化共同促进了CO2、CH4和N2O的生成与排放,表明高营养负荷是增加沉积物-水界面温室气体通量的关键驱动因素。
(2) 在施肥条件下,牡蛎养殖显著降低了沉积物间隙水营养盐的积累量,减缓了氧化还原电位的下降,并有效抑制了温室气体的排放。
(3) 温室气体通量与间隙水中的TAN、NO2--N、NO3--N和SRP浓度,沉积物叶绿素a含量及孔隙度呈正相关,与沉积物ORP和温度呈负相关。牡蛎养殖影响了环境因子与气体通量之间的关系,体现了其通过多途径调节沉积物生物地球化学过程的生态功能。
| [1] |
Liu S, Gao Q, Wu J, et al. Spatial distribution and influencing mechanism of CO2, N2O and CH4 in the Pearl River Estuary in summer[J]. Science of the Total Environment, 2022, 846: 157381. DOI:10.1016/j.scitotenv.2022.157381 (  0) |
| [2] |
Yuan W, Liang M, Gao Y, et al. China's greenhouse gas budget during 2000-2023[J]. National Science Review, 2025, 12(4): nwaf069. DOI:10.1093/nsr/nwaf069 ( 0) |
| [3] |
Calvin K, Dasgupta D, Krinner G, et al. Climate Change 2023: Synthesis Report. Contribution of Working Groups Ⅰ, Ⅱ and Ⅲ to the Sixth Assessment Report of the Intergovernmental Panel on Climate Change[R]. Geneva: IPCC, 2023.
( 0) |
| [4] |
Bauer J E, Cai W J, Raymond P A, et al. The changing carbon cycle of the coastal ocean[J]. Nature, 2013, 504(7478): 61-70. DOI:10.1038/nature12857 ( 0) |
| [5] |
Chen C T A, Borges A V. Reconciling opposing views on carbon cycling in the coastal ocean: Continental shelves as sinks and near-shore ecosystems as sources of atmospheric CO2[J]. Deep Sea Research Part Ⅱ: Topical Studies in Oceanography, 2009, 56(8-10): 578-590. DOI:10.1016/j.dsr2.2009.01.001 ( 0) |
| [6] |
Ward N D, Megonigal J P, Bond-Lamberty B, et al. Representing the function and sensitivity of coastal interfaces in Earth system models[J]. Nature Communications, 2020, 11(1): 2458. DOI:10.1038/s41467-020-16236-2 ( 0) |
| [7] |
González-Piana M, Donato A, Corina S, et al. CO2, CH4, and N2O emissions in two major subtropical hydroelectric reservoirs in South America are linked to anthropogenic eutrophication[J]. Earth Systems and Environment, 2026, 10: 1935-1959. DOI:10.1007/s41748-025-00721-z ( 0) |
| [8] |
Tagliarolo M, Scharler U M. Spatial and temporal variability of carbon budgets of shallow South African subtropical estuaries[J]. Science of the Total Environment, 2018, 626: 915-926. DOI:10.1016/j.scitotenv.2018.01.166 ( 0) |
| [9] |
Rosentreter J A, Wells N S, Ulseth A J, et al. Divergent gas transfer velocities of CO2, CH4, and N2O over spatial and temporal gradients in a subtropical estuary[J]. Journal of Geophysical Research: Biogeosciences, 2021, 126(10): e2021JG006270. DOI:10.1029/2021JG006270 ( 0) |
| [10] |
Harley J F, Carvalho L, Dudley B, et al. Spatial and seasonal fluxes of the greenhouse gases N2O, CO2 and CH4 in a UK macrotidal estuary[J]. Estuarine, Coastal and Shelf Science, 2015, 153: 62-73. DOI:10.1016/j.ecss.2014.12.004 ( 0) |
| [11] |
Rosentreter J A, Laruelle G G, Bange H W, et al. Coastal vegetation and estuaries are collectively a greenhouse gas sink[J]. Nature Climate Change, 2023, 13(6): 579-587. DOI:10.1038/s41558-023-01682-9 ( 0) |
| [12] |
He S, Guo X, Zhao M, et al. Ecological restoration reduces greenhouse gas emissions by altering planktonic and sedimentary microbial communities in a shallow eutrophic lake[J]. Environmental Research, 2025, 275: 121400. DOI:10.1016/j.envres.2025.121400 ( 0) |
| [13] |
Zhou C, Peng Y, Zhou M, et al. Cyanobacteria decay alters CH4 and CO2 produced hotspots along vertical sediment profiles in eutrophic lakes[J]. Water Research, 2024, 265: 122319. DOI:10.1016/j.watres.2024.122319 ( 0) |
| [14] |
Yao X, Zhang L, Zhang Y, et al. Water diversion projects negatively impact lake metabolism: A case study in Lake Dazong, China[J]. Science of the Total Environment, 2018, 613-614: 1460-1468. DOI:10.1016/j.scitotenv.2017.06.130 ( 0) |
| [15] |
陈烨, 孙治雷, 吴能友, 等. 海洋沉积物中甲烷代谢微生物的研究进展[J]. 海洋地质与第四纪地质, 2022, 42(6): 82-92. Chen Y, Sun Z L, Wu N Y, et al. Advances in the study of methane-metabolizing microbial communities in marine sediments[J]. Marine Geology & Quaternary Geology, 2022, 42(6): 82-92. ( 0) |
| [16] |
Wang Y, Feng X, Natarajan V P, et al. Diverse anaerobic methane-and multi-carbon alkane-metabolizing archaea coexist and show activity in Guaymas Basin hydrothermal sediment[J]. Environmental Microbiology, 2019, 21(4): 1344-1355. DOI:10.1111/1462-2920.14568 ( 0) |
| [17] |
罗国芝, 邵李娜. 水产养殖活动中N2O的排放研究进展[J]. 中国水产科学, 2019, 26(3): 604-619. Luo G Z, Shao L N. Analysis of current research status and prospects of N2O emissionfrom aquaculture production[J]. Journal of Fishery Sciences of China, 2019, 26(3): 604-619. ( 0) |
| [18] |
Chen Y, Liu Q, Xu X W. Spatio-temporal variability of nitrogen-cycling potentials in particle-attached and free-living microbial communities in the Yangtze River estuary and adjacent regions[J]. Marine Pollution Bulletin, 2025, 217: 118121. DOI:10.1016/j.marpolbul.2025.118121 ( 0) |
| [19] |
农业农村部渔业渔政管理局, 全国水产技术推广总站, 中国水产学会. 2024中国渔业统计年鉴[M]. 北京: 中国农业出版社, 2024. Bureau of Fisheries, Ministry of Agriculture and Rural Affairs of the People's Republic of China, National Fisheries Technology Extension Center, China Society of Fisheries. China Fishery Statistical Yearbook 2024[M]. Beijing: China Agriculture Press, 2024. ( 0) |
| [20] |
Moreira A, Figueira E, Pecora I L, et al. Biochemical alterations in native and exotic oyster species in Brazil in response to increasing temperature[J]. Comparative Biochemistry and Physiology Part C: Toxicology & Pharmacology, 2017, 191: 183-193. ( 0) |
| [21] |
Yu L, Gan J. Mitigation of eutrophication and hypoxia through oyster aquaculture: An ecosystem model evaluation off the Pearl River Estuary[J]. Environmental Science & Technology, 2021, 55(8): 5506-5514. ( 0) |
| [22] |
张延青, 张少军, 周毅, 等. 贝类对海水养殖新源水悬浮物的生物沉积作用[J]. 农业工程学报, 2011, 27(8): 299-303. Zhang Y Q, Zhang S F, Zhou Y, et al. Biodeposition of suspended particles in fresh seawater for industrial aquacultureby filter-feeding bivalves[J]. Transactions of the CSAE, 2011, 27(8): 299-303. ( 0) |
| [23] |
秦培兵, 卢继武. 滤食性贝类对浅海养殖系统中营养盐循环的影响[J]. 海洋科学, 2001(5): 27-29. Qin P B, Lu J W. Effects of filter-feeding bivalves on nutrient cycle of mariculture system: A view[J]. Marine Sciences, 2001(5): 27-29. ( 0) |
| [24] |
高亚平, 方建光, 房景辉, 等. 长牡蛎和紫贻贝对浒苔微观繁殖体生物控制的可行性研究[J]. 海洋与湖沼, 2018, 49(5): 1116-1122. Gao Y P, Fang J G, Fang J H, et al. Biological control Feasibility of pacific oyster Crassostrea gigas and bule mussel Mytilus edulis on Ulva prolifera microscopic propagules[J]. Oceanologia et Limnologia Sinica, 2018, 49(5): 1116-1122. ( 0) |
| [25] |
Chen X W J, Zhang Z, Pan M J, et al. Oyster farming acts as a marine carbon dioxide removal (mCDR) hotspot for climate change mitigation[J]. Proceedings of the National Academy of Sciences, 2025, 122(36): e2504004122. DOI:10.1073/pnas.2504004122 ( 0) |
| [26] |
Yang P, Lai D Y F, Yang H, et al. Carbon dioxide dynamics from sediment, sediment-water interface and overlying water in the aquaculture shrimp ponds in subtropical estuaries, southeast China[J]. Journal of Environmental Management, 2019, 236: 224-235. ( 0) |
| [27] |
刘学芹, 张建根, 刘梦琳. GB/T 50123-2019《土工试验方法标准》相关试验方法探析[J]. 天津建设科技, 2020, 30(5): 1-4. Liu X Q, Zhang J G, Liu M L. Analysis of related test methods in GB/T 50123-2019 "Standard for geotechnical testing method"[J]. Tianjin Construction Science and Technology, 2020, 30(5): 1-4. ( 0) |
| [28] |
Porter E, Cornwell J, Sanford L. Effect of oysters Crassostrea virginica and bottom shear velocity on benthic-pelagic coupling and estuarine water quality[J]. Marine Ecology Progress Series, 2004, 271: 61-75. DOI:10.3354/meps271061 ( 0) |
| [29] |
American Public Health Association, American Water Works Association, Water Environment Federation. Standard methods for the Examination of Water and Wastewater[M]. 22nd ed. Washington D C: American Public Health Association, 2012.
( 0) |
| [30] |
Hu B, Wang D, Meng W, et al. Greenhouse gas diffusive fluxes at the sediment-water interface of sewage-draining rivers[J]. Journal of Soils and Sediments, 2020, 20(8): 3243-3253. DOI:10.1007/s11368-020-02653-9 ( 0) |
| [31] |
Donis D, Flury S, Stöckli A, et al. Full-scale evaluation of methane production under oxic conditions in a mesotrophic lake[J]. Nature Communications, 2017, 8(1): 1661. DOI:10.1038/s41467-017-01648-4 ( 0) |
| [32] |
Sun H, Yu R, Liu X, et al. Drivers of spatial and seasonal variations of CO2 and CH4 fluxes at the sediment water interface in a shallow eutrophic lake[J]. Water Research, 2022, 222: 118916. DOI:10.1016/j.watres.2022.118916 ( 0) |
| [33] |
Smith V H, Schindler D W. Eutrophication science: Where do we go from here?[J]. Trends in Ecology & Evolution, 2009, 24(4): 201-207. ( 0) |
| [34] |
Zhao K, Fu H, Wang Q, et al. Determination of water quality characteristics and nutrient exchange flux at the sediment-water interface of the Yitong River in Changchun City, China[J]. Water, 2021, 13(24): 3555. DOI:10.3390/w13243555 ( 0) |
| [35] |
陈纯, 李思嘉, 肖利娟, 等. 营养盐加富和鱼类添加对浮游植物群落演替和多样性的影响[J]. 生态学报, 2013, 33(18): 5777-5784. Chen C, Li S J, Xiao L J, et al. Effects of nutrient enrichment and fish stocking on succession and diversity ofphytoplankton community[J]. Acta Ecologica Sinica, 2013, 33(18): 5777-5784. ( 0) |
| [36] |
李柯, 关保华, 刘正文. 蓝藻碎屑分解速率及氮磷释放形态的实验分析[J]. 湖泊科学, 2011, 23(6): 919-925. Li K, Guan B H, Liu Z W. Experiments on decomposition rate and release forms of nitrogen and phosphorus fromthe decomposing cyanobacterial detritus[J]. Journal of Lake Sciences, 2011, 23(6): 919-925. ( 0) |
| [37] |
Huisman J, Codd G A, Paerl H W, et al. Cyanobacterial blooms[J]. Nature Reviews Microbiology, 2018, 16(8): 471-483. DOI:10.1038/s41579-018-0040-1 ( 0) |
| [38] |
佟飞, 冯雪, 袁华荣, 等. 牡蛎养殖对大鹏澳环境因子与浮游菌落扰动研究[J]. 南方水产科学, 2024, 20(5): 32-41. Tong F, Feng X, Yuan H R, et al. Study on disturbance of oyster culture on environmental factors andbacterioplankton in Dapeng Cove[J]. South China Fisheries Science, 2024, 20(5): 32-41. ( 0) |
| [39] |
Jiang Z, Du P, Liao Y, et al. Oyster farming control on phytoplankton bloom promoted by thermal discharge from a power plant in a eutrophic, semi-enclosed bay[J]. Water Research, 2019, 159: 1-9. ( 0) |
| [40] |
Azam F, Fenchel T, Field J, et al. The ecological role of water-column microbes in the sea[J]. Marine Ecology Progress Series, 1983, 10: 257-263. DOI:10.3354/meps010257 ( 0) |
| [41] |
Wang F F, Song A G, Zhang Y, et al. Saltmarsh sediments with wastewater input emit more carbon greenhouse gases but less N2O than mangrove sediments[J]. CATENA, 2022, 213: 106205. DOI:10.1016/j.catena.2022.106205 ( 0) |
| [42] |
杨科, 刘丽香, 韩永伟, 等. 植物净化富营养水体过程中温室气体变化及影响因素初探[J]. 中国环境科学, 2023, 43(10): 5403-5411. Yang K, Liu L X, Han Y W, et al. Preliminary study on the changes and influencing factors of greenhouse gases during the purification of eutrophic water by plants[J]. China Envronmental Science, 2023, 43(10): 5403-5411. ( 0) |
| [43] |
Qian M, Zhou Y, Zhou L, et al. Inflow-modulated inputs of dissolved organic matter fuel carbon dioxide emissions from a large hyper-eutrophic lake[J]. Water Research, 2025, 273: 123082. DOI:10.1016/j.watres.2024.123082 ( 0) |
| [44] |
郝晓地, 王邦彦, 刘然彬, 等. 碳中和VS水体甲烷超量释放/甲烷悖论[J]. 环境科学学报, 2021, 41(5): 1593-1598. Hao X D, Wang B Y, Liu R B, et al. Carbon neutrality vs excess methane release from water environments/the methane paradox[J]. Acta Scientiae Circumstantiae, 2021, 41(5): 1593-1598. ( 0) |
| [45] |
Zhu G, Shi H, Zhong L, et al. Nitrous oxide sources, mechanisms and mitigation[J]. Nature Reviews Earth & Environment, 2025, 6(9): 574-592. ( 0) |
| [46] |
Sun X, Filgueira R, Sun Y, et al. Intensive oyster farming enhances carbon storage in sediments over decades[J]. Communications Earth & Environment, 2025, 6(1): 383. ( 0) |
| [47] |
张升辉, 孙婧, 赵淼, 等. 扇贝养殖季烟台近海CH4和DMS的时空分布及影响因素[J]. 中国海洋大学学报(自然科学版), 2024, 54(1): 86-94. Zhang S H, Sun J, Zhao M, et al. Tempo spatial distributions and influencing factors of CH4 and DMS during scallop farming in Yantai offshore[J]. Periodical of Ocean University of China, 2024, 54(1): 86-94. DOI:10.16441/j.cnki.hdxb.20220395 ( 0) |
| [48] |
Welsh D T, Nizzoli D, Fano E A, et al. Direct contribution of clams (Ruditapes philippinarum) to benthic fluxes, nitrification, denitrification and nitrous oxide emission in a farmed sediment[J]. Estuarine, Coastal and Shelf Science, 2015, 154: 84-93. DOI:10.1016/j.ecss.2014.12.021 ( 0) |
| [49] |
Tan E, Zou W, Jiang X, et al. Organic matter decomposition sustains sedimentary nitrogen loss in the Pearl River Estuary, China[J]. Science of the Total Environment, 2019, 648: 508-517. DOI:10.1016/j.scitotenv.2018.08.109 ( 0) |
| [50] |
Yang J Y T, Hsu T C, Tan E, et al. Sedimentary processes dominate nitrous oxide production and emission in the hypoxic zone off the Changjiang River estuary[J]. Science of The Total Environment, 2022, 827: 154042. DOI:10.1016/j.scitotenv.2022.154042 ( 0) |
| [51] |
Lapham L L, Lloyd K G, Fossing H, et al. Methane leakage through the sulfate-methane transition zone of the Baltic seabed[J]. Nature Geoscience, 2024, 17(12): 1277-1283. DOI:10.1038/s41561-024-01594-z ( 0) |
| [52] |
Li X, Yu R, Wang J, et al. Fluxes in CO2 and CH4 and influencing factors at the sediment-water interface in a eutrophic saline lake[J]. Journal of Environmental Management, 2023, 344: 118314. DOI:10.1016/j.jenvman.2023.118314 ( 0) |
| [53] |
Ye F, Wang Y, Duan L, et al. Nitrous oxide (N2O) emissions at the air-water-sediment interfaces of cascade reservoirs in the Yunnan-Guizhou Plateau: Spatial patterns and environmental controls[J]. Environmental Pollution, 2024, 357: 124436. DOI:10.1016/j.envpol.2024.124436 ( 0) |
| [54] |
Zhang T, Huang X, Yang Y, et al. Spatial and temporal variability in nitrous oxide and methane emissions in urban riparian zones of the Pearl River Delta[J]. Environmental Science and Pollution Research, 2016, 23(2): 1552-1564. DOI:10.1007/s11356-015-5401-y ( 0) |
| [55] |
Li Y, Shang J, Zhang C, et al. The role of freshwater eutrophication in greenhouse gas emissions: A review[J]. Science of the Total Environment, 2021, 768: 144582. DOI:10.1016/j.scitotenv.2020.144582 ( 0) |
| [56] |
Shi P, Tan Z, Fu Y, et al. Nitrogen utilization dynamics in a tropical estuary: Interplay of temperature and phytoplankton communities[J]. Marine Environmental Research, 2025, 205: 107018. DOI:10.1016/j.marenvres.2025.107018 ( 0) |
| [57] |
Yang Y, Chen J, Chen X, et al. Cyanobacterial bloom induces structural and functional succession of microbial communities in eutrophic lake sediments[J]. Environmental Pollution, 2021, 284: 117157. DOI:10.1016/j.envpol.2021.117157 ( 0) |
| [58] |
Tanikawa W, Tadai O, Morono Y, et al. Geophysical constraints on microbial biomass in subseafloor sediments and coal seams down to 2.5 km off Shimokita Peninsula, Japan[J]. Progress in Earth and Planetary Science, 2018, 5(1): 58. DOI:10.1186/s40645-018-0217-2 ( 0) |
| [59] |
Lei D, Lei M, Chen M, et al. Effects of temperature on methane production and oxidation during laboratory incubation of sediments from Meiziya Reservoir, China[J]. Water, Air, & Soil Pollution, 2024, 235(3): 206. ( 0) |
| [60] |
Zheng H, Feng Y, Wang Y, et al. Seasonal variations in greenhouse gas production in coastal sandy sediments[J]. Marine Pollution Bulletin, 2025, 221: 118573. DOI:10.1016/j.marpolbul.2025.118573 ( 0) |
2. Yazhou Bay Innovation Research Institute, Hainan Tropical Ocean University, Sanya 572000, China;
3. Marine Economic Promotion Bureau, Changdao Marine Ecological Civilization Comprehensive Experimental Zone, Yantai 265800, China