 2026, Vol. 56


龙须菜(Gracilariopsis lemaneiformis)是中国重要的经济红藻之一,广泛应用于琼胶生产[1-2]及鲍鱼饲料[3]领域。此外,龙须菜富含多种活性物质,包括多糖、藻胆蛋白、膳食纤维和脂肪酸[4-7],具有较高的保健与营养价值。在现有栽培体系中,龙须菜通常呈现出规则的一级、二级、三级分枝结构[8],然而,近年来在栽培海区观测到形态上明显异于正常结构的异常分枝,其表型不规则,外观形态多样:有的分枝卷曲呈锐角或缠绕成圆圈;有的呈扁平的叶片状;有的分枝从一个生长点呈发散状分布,且分布密集[9]。异常分枝的大量产生不仅制约了龙须菜的生物量积累,还使其易于腐烂、难以运输,对下游加工造成不利影响[9]。
分枝是植物重要的发育性状,分枝表型对植物优良株型的形成起着至关重要的作用。对于藻类来说,藻类的分枝与否、分枝类型及其密集程度直接影响其漂浮能力[10]、营养盐吸收效率、光合效率[11-13]、繁殖方式[14-16]及代谢水平[17]。植物的分枝形成与发育受多种无机营养盐调控,其中氮(N)和磷(P)是尤为关键的限制因子。氮作为植物营养的重要组成部分,参与蛋白质、氨基酸和核酸等基础物质的合成。在高等植物中,氮素充足,可促进顶端优势,抑制侧芽萌发;当氮素不足时,植物的侧芽分化增加,分蘖数量上升[18]。对藻类而言,充足的氮素供应能够增强光合作用和蛋白质的合成,从而提高藻类对环境胁迫的抵抗力[19],而氮源严重不足可显著抑制其生长并改变色素含量与代谢活性[20]。磷是核酸、蛋白质、磷脂和叶绿素的重要组成成分,与能量代谢、光合作用及氮素同化密切相关,磷的充足供应能够提高植物的光合效率,进而加快植物生长速度。特别是在藻类中,充足的磷供应有利于其光合磷酸化过程的进行和色素的合成,从而提高生长速度[21]。前期研究发现,龙须菜分枝表型的异常程度与海区内氮和磷浓度均显著负相关,即海水中的氮和磷浓度越低,龙须菜的分枝表型越异常[22],结合转录组研究[9, 22]证明,龙须菜异常分枝发育与氮磷限制响应具有一定的相关性。
然而龙须菜响应氮磷限制的具体分子机制尚不清楚,因此本研究以不同氮、磷浓度组合为实验条件,人工诱导异常分枝,探究营养盐限制与异常分枝形成之间的关系,同时对人工诱导出的异常分枝进行形态、生理和转录水平分析,旨在初步探究龙须菜异常分枝形成机制,并为后续解析分枝发育机制奠定基础。
1 材料与方法 1.1 实验材料本研究选用的龙须菜异常分枝品系(下文统称为“CB品系”)保种于中国海洋大学藻类分子遗传学与育种研究室。
1.2 实验方法 1.2.1 龙须菜材料的培养采用实验室保种的CB品系龙须菜藻体,选取健康藻体作为实验材料,将其置于含有Provasoli(Pro)培养基(氮终浓度为10 mg/L,磷终浓度为1 mg/L)的人工海水中驯化培养,培养条件如下:温度为20 ℃,光照强度为15 μmol·m-2·s-1,光周期为12 h/12 h(L/D),持续充气以保持培养液均匀混合。培养过程中,每2 d更换一次培养液。
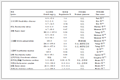
1.2.2 诱导卷曲分枝产生的营养盐浓度设置为尽可能模拟异常分枝发生时期栽培海区的营养盐水平,本研究参考了课题组前期对多个栽培海区海水样品的营养盐监测结果。其中,氮浓度以无机氮(NO3--N与NH4+-N含氮浓度之和,本文定义为总氮浓度)计算,监测结果显示,栽培海区海水总氮浓度主要分布在0.1~1 mg/L,磷酸盐(PO43--P)含磷浓度主要分布在0.01~0.1 mg/L[22]。基于此,本研究分别设置氮浓度为0.1、0.5、1 mg/L三个梯度以及磷浓度为0.01、0.05、0.1 mg/L三个梯度,并进行3×3组合形成9个处理组(见表 1),以覆盖海区营养盐范围内的不同N/P比,用于筛选可稳定诱导大量卷曲分枝(Massively curled branches, MCB)形成的营养盐限制条件。与常规培养条件(Pro培养基:氮浓度为10 mg/L、磷浓度为1 mg/L)相比,上述处理均处于不同程度的营养盐限制状态。
|
表 1 诱导卷曲的预实验浓度设置 Table 1 Pre-experimental concentration design for induced curling branches |
CB品系龙须菜在含有Pro培养基的海水中驯化培养一周后,将藻体分别转入不同氮、磷浓度组合的处理组中进行培养,正式处理周期为30 d,其间每48 h更换一次新配制的相应处理人工海水,以维持营养盐浓度稳定。培养期间每天观察各组分枝表型变化,记录出现异常分枝的组别以及各组别中异常分枝的发生时间。将异常分枝置于培养皿中,在体视镜下观察,并使用拍照软件MShot Image Analysis System记录其分枝外观形态。
1.2.3 显微结构观察分别切取同一营养条件下培养出的正常分枝(Normal branch,NB)和卷曲分枝(Massively curled branch,MCB)各0.5 cm,置于4%多聚甲醛组织细胞固定液中,4 ℃固定1 h;随后将其置于0.3 g/mL蔗糖-多聚甲醛溶液中4 ℃脱水12 h;将脱水完全的组织用OCT冰冻切片包埋剂进行包埋,液氮速冻后转移至-20 ℃冻存20 min;将冷冻后的组织块放置于切片机上进行切片;制片后置于光学显微镜下观察,同时利用拍照软件进行记录。
1.2.4 叶绿素荧光参数测定利用灭菌的手术刀片切取材料,擦干藻体表面的水分,每份样品精确称量0.01 g,同种形态的分枝称取3份。先将材料暗适应15 min,使用封闭式叶绿素荧光成像系统FluorCAMMF800(品牌:PSI,捷克)测定不同形态分枝的荧光淬灭曲线(Quenching curve),并获得最大光合效率(Maximum photosynthetic efficiency,QY_max)和非光化学淬灭系数(Non-photochemical quenching coefficient,NPQ)等叶绿素荧光参数。
1.2.5 活性氧、丙二醛含量及过氧化物酶系酶活检测超氧化物歧化酶(Superoxide dismutase,SOD)、过氧化物酶(Peroxidase,POD)、丙二醛(Malondialdehyde,MDA)、过氧化氢酶(Catalase,CAT)、活性氧(Reactive oxygen species,ROS)检测均采用苏州格锐思生物科技有限公司提供的试剂盒。
1.2.6 转录组测序与分析在MCB首次出现时进行第一次取材,此阶段取的是龙须菜NB;在大量MCB形成后进行第二次取材,此阶段取的是卷曲状态的龙须菜分枝MCB。取材时利用灭菌的手术刀片切取分枝,每份样品称取100 mg,每组龙须菜分枝样品设置3个生物学重复。龙须菜分枝样品取材后,立刻放进液氮里进行速冻,然后以干冰维持低温条件进行寄送。本次转录组测序由北京诺禾致源科技股份有限公司完成。
转录组分析流程如下:利用Oligo(dT)磁珠富集mRNA,合成双链cDNA后,经末端修复、加A尾、接头连接及扩增纯化获得文库,合格文库经Illumina平台进行双端测序。原始数据使用fastp进行质控和过滤,去除接头、含N及低质量序列(Reads),获得过滤后序列(Clean reads)。Clean reads通过HISAT2软件(v2.2.1)比对至参考基因组,利用featureCounts软件(v2.0.6)计算基因读数并转换为每千剪辑片段每百万映射片段数(Fragments per kilobase of exon model per million mapped fragments,FPKM)表达量。差异表达分析采用DESeq2软件(v1.42.0),显著性水平(校正后的p值)的标准设定为padj ≤ 0.05,且|log2FC|≥1。差异基因经clusterProfiler软件(v4.8.1)进行GO功能注释和KEGG通路富集分析,显著阈值设定为P<0.05。
2 结果 2.1 诱导MCB形成条件在不同氮、磷浓度组合的培养条件下,龙须菜藻体形态表现出明显差异。多数处理组的分枝维持正常线性生长,仅第9组(氮浓度1 mg/L,磷浓度0.1 mg/L)在培养第30天时出现异常形态,藻体分枝出现卷曲现象。水稻、玉米等高等植物均以卷曲指数(Leaf rolling index,LRI)评价叶片卷曲的程度[23-24]。有研究[25]采用横向卷曲度(Curling index of transverse direction,CIT)和叶片纵向卷曲度(Curling index of longitudinal direction,CIL)来评价白菜叶片的卷曲。由于龙须菜分枝呈细长圆柱形,只能进行纵向测量,因此本研究以叶片CIL来作为判断是否属于卷曲的标准。测量方法如图 1A所示,分别测量伸直状态的分枝长度(LS)和自然状态下的分枝长度(LN),然后计算CIL(DCIL):DCIL=(LS-LN)/LS。本研究以本实验室以往研究[22]中的MCB(见图 1B)的CIL作为判断是否卷曲的标准,图 1中LS为伸直状态下的分枝长度,LN是自然卷曲状态下基部至最外侧弯曲端点的直线距离,计算可得CIL为0.44,即纵卷指数大于0.44则判定为卷曲。

|
(A. CIL测量示意图;B. 本实验室前期发表文章中MCB的图片[9]。LS为伸直状态下的分枝长度,LN是自然卷曲状态下基部至最外侧弯曲端点的直线距离。A. Schematic diagram of longitudinal curl measurement; B. Curly branch image from a previously published article in our laboratory[9]。LS represents the branch length measured after straightening, and LN denotes the straight-line distance from the branch base to the outermost curved tip in its natural curled state. ) 图 1 CIL的测量 Fig. 1 Measurement of CIL |
在第9组(氮浓度为1 mg/L,磷浓度为0.1 mg/L,N/P为10)的营养条件下,共产生62处MCB,如图 2A所示,其他组并未出现此现象。因此初步确定该组的营养条件能够诱导产生MCB。

|
(A. MCB整体状态;B. 体式镜观察结果一;C. 体式镜观察结果二。A. Overall state of curly branching; B. Observation result one under a stereomicroscope; C. Observation result two under a stereomicroscope. ) 图 2 诱导产生的MCB Fig. 2 MCB induced by induction |
在氮浓度为1 mg/L、磷浓度为0.1 mg/L的营养条件下诱导出的MCB,其藻体呈现显著的卷曲形态,这些卷曲的分枝普遍较短且弯曲,部分枝条相互缠绕,形成环状或螺旋状结构(见图 2A)。本次实验最终诱导产生62处MCB,其平均叶片CIL为0.88。在体式显微镜下观察(见图 2B和图 2C)可见,分枝在原有分枝中部位置开始卷曲,分枝末端逐渐变细,部分样品可见分枝回环现象。
为进一步比较不同形态样品的组织结构,对MCB和NB进行冷冻切片观察(见图 3)。NB的皮层细胞排列紧密且规则,细胞大小较均一,层次结构明显;髓部细胞分布规则,细胞间隙较小,组织结构完整。相比之下,MCB中的皮层细胞层数较少,细胞排列明显松散,部分细胞呈不规则形状。髓部区域同样受到影响,细胞排列不规则,细胞边界不清晰。此外,MCB截面中可见到组织轮廓不如NB清晰,细胞层之间的界限模糊,且MCB的色素分布整体浅淡,这提示其色素代谢可能受到抑制;NB的皮层区域呈现鲜明的红色,这无疑是藻红蛋白等色素沉积的体现,表明其色素代谢正常。

|
图 3 MCB和NB的显微结构观察 Fig. 3 Microscopic observation of MCB and NB |
为检测形态改变是否影响光合作用,选择诱导产生的MCB和同一营养条件下的NB进行叶绿素荧光参数检测。结果如图 4所示,MCB样品的QY_max显著低于NB的QY_max(P<0.000 1),这表明MCB的光系统Ⅱ(PSⅡ)活性受到抑制。与此同时,MCB的NPQ也明显下降(P<0.000 1),说明其能量耗散能力减弱。整体上,MCB的光化学效率与光能调节能力低于NB,这表明在低营养盐诱导分枝形成卷曲形态的过程中,其光合作用活性受到显著抑制。

|
(A. 最大光化学效率QY_max;B. 非光化学猝灭系数NPQ。数据为平均值±标准差(n=3)。****表示P<0.000 1的显著差异。A. Maximum photochemical efficiency QY_max; B. Non-photochemical quenching coefficient NPQ. Data are presented as mean ± standard deviation (n=3). **** indicates a significant difference at P < 0.000 1. ) 图 4 MCB和NB叶绿素荧光参数检测结果 Fig. 4 Detection results of chlorophyll fluorescence parameters of MCB and NB |
为探究分枝形态的变化是否影响氧化还原等抗逆相关指标,本研究选择诱导产生的MCB和同一营养条件下的NB来进行ROS含量、MDA含量及主要抗氧化酶(POD、SOD、CAT)活性的检测,结果如图 5所示,MCB的ROS含量约为(681.56±57.26) μmol/g,显著高于NB的(532.75±53.59) μmol/g(P<0.05),MCB的MDA含量约为(25.24±0.28) nmol/g,显著高于NB的(19.42±1.35) nmol/g(P<0.05)。POD活性在MCB中约为(3.12±0.25) U,明显高于NB的(1.09±0.01) U(P<0.01)。SOD活性在MCB中达到(451.31±13.09) U/g,而NB仅(194.50±36.93) U/g(P<0.001)。CAT活性在MCB中为(258.56±4.22) U,显著高于其在NB中的(201.83±2.49) U(P<0.01)。结果得出,MCB样品中MDA含量及三种主要抗氧化酶活性均显著高于NB,这说明两种分枝形态之间在氧化还原相关生理参数上存在显著差异。

|
(A. ROS含量;B. MDA含量;C. POD活性;D. SOD活性;E. CAT活性。数据为平均值±标准差(n=3)。*、**、***分别表示P<0.05、P<0.01、P<0.001的显著差异。A. ROS content; B. MDA content; C. POD activity; D. SOD activity; E. CAT activity. Data are presented as mean ± standard deviation (n=3).*, **, *** indicate significant differences at P < 0.05, P < 0.01, and P < 0.001, respectively ) 图 5 MCB和NB抗氧化相关生理指标 Fig. 5 Antioxidant-related physiological indicators between curled branches and normal branches |
为分析低营养盐条件下诱导出的龙须菜MCB与NB样品的基因表达差异,对两组样品进行RNA测序。结果如表 2所示,MCB样品共获得128 458 368条原始序列(Raw reads),NB样品共获得132 438 752条原始测序序列,对应原始碱基量分别为19.27与19.86 Gb。经去除接头序列、poly-N序列及低质量序列后,MCB组获得126 551 025条Clean reads,NB组获得127 831 413条Clean reads。所有样品的测序错误率均低至0.01%,Q20值均在98.51%~98.64%,Q30值在95.94%~96.22%,表明测序数据质量良好,符合后续转录组分析的标准。
|
|
表 2 转录组测序数据质量统计结果 Table 2 Statistics of transcriptome sequencing data quality |
为揭示诱导产生的龙须菜MCB与NB在分子水平上的差异,对两组样品的转录组数据进行差异表达分析。样本基因表达量分布盒形图(见图 6A)显示,所有样本的基因表达量(换算为“每百万条转录本中来自该基因的转录本数量”)分布高度一致,各样本的四分位范围相近,中位数水平亦十分接近,未观察到明显偏移。MCB与NB两组样本间的表达分布重叠程度高,重复样本之间的离散程度较小,整体分布形态稳定。各样本的最高值、最低值及离群点数量均处于合理范围,说明测序数据质量良好。样本间相关性热图(见图 6B)显示,MCB组和NB组组内的三个样本的相关性都较高,拟合优度(R2)在0.956~0.988,组内样本相关性高,这说明重复实验效果良好,样本间技术误差或生物差异较小。组间相关性低于组内相关性,说明MCB组中可能基因表达量发生了变化。差异表达基因的韦恩图表示,MCB与NB两组样品间共有7 442个基因在两组中均有表达,而仅在MCB组中特异表达的基因有191个,NB组中特异表达基因有78个(见图 6C)。此外,差异基因统计结果(见图 6D)显示,共鉴定到2 356个差异表达基因(Differentially expressed genes,DEGs),其中上调基因1 429个,下调基因927个。

|
(A. 样本基因表达量分布盒形图;B. 样本间相关性热图;C. 差异表达基因的韦恩图;D. 差异基因统计结果。A. Box plot of gene expression levels in samples; B. Correlation heatmap between samples; C. Venn diagram of differentially expressed genes; D. Statistics of differentially expressed genes. ) 图 6 基因表达定量情况 Fig. 6 Quantitative analysis of gene expression |
为探讨这些差异表达基因的功能特征,利用Gene Ontology(GO)数据库进行功能注释与富集分析。差异基因共被注释于三大GO功能类别:生物过程、细胞组分和分子功能(见图 7)。如图 8所示: 在“生物过程”分类中,主要富集的GO术语包括“细胞代谢过程(Cellular metabolic process)”、“生物合成过程(Biosynthetic process)”和“有机酸代谢过程(Organic acid metabolic process)”等;在“细胞组分”分类中,富集条目主要涉及“膜(Membrane)”、“类囊体(Thylakoid)”及“光合膜(Photosynthetic membrane)”;在“分子功能”分类中,主要富集条目包括“催化活性(Catalytic activity)”、“氧化还原酶活性(Oxidoreductase activity)”及“烟酰胺腺嘌呤二核苷酸结合(NAD binding)”等。

|
(A.生物过程;B. 细胞组分;C.分子功能. 方框标注的是前5位富集程度最高的GO术语,椭圆框则表示富集程度低于前5位的GO术语。A. Biological process; B.Cellular component; C. Molecular function. Boxes indicate the top 5 most enriched GO terms, while ovals represent GO terms with enrichment levels below the top 5. ①Biological process; ②Cellular process; ③Metabolic process; ④Cellular metabolic process; ⑤Organic acid metabolic process; ⑥Oxoacid metabolic process; ⑦Cellular biosynthetic process; ⑧Biosynthetic process; ⑨Small molecule biosynthetic process; ⑩Organic substance catabolic Process; B11 Cellular component; B12 Thylakoid; B13 Membrane; B14 Thylakoid part; B15 Membrane part; B16 Photosynthetic membrane; B17 Molecular function; B18 Catalytic activity; B19 Binding; B20 Hydrolase activity; B21 Oxidoreductase activity; B22 Cofactor binding; B23 Peptidase activity; B24 Serine hydrolase activity; B25 Coenzyme binding; B26 Serine-type peptidase activity; B27 NAD Binding; B28 Serine-type endopeptidase activity. ) 图 7 MCB与NB所有DEGs中富集的GO术语对应的生物过程、细胞组分及分子功能网络 Fig. 7 GO term enrichment networks for all DEGs between MCB and NB, corresponding to biological processes,cellular components, and molecular functions |

|
(点的大小表示富集到的差异基因数目(NEDG),颜色代表显著性水平(padj)。The size of the dots represents the number of enriched differential genes (NEDG), the color indicates the significance level (padj). ) 图 8 GO富集气泡图 Fig. 8 GO Enrichment bubble plot |
GO富集结果显示,“光合膜(Photosynthetic membrane)”、“类囊体(Thylakoid)”以及“类囊体膜(Thylakoid membrane)”等与光合作用有关的通路在MCB中均表现为大量基因下调(见图 9A),氧化还原酶活性相关的基因显著上调(见图 9B),与此同时,“小分子代谢过程(Small molecule metabolic process)(见图 9C)”“有机酸代谢通路(Organic acid metabolic process)”及“氧化酸代谢过程(Oxoacid metabolic process)”等与能量代谢相关的通路显著上调。

|
(A. 光合作用相关通路中的基因表达情况;B. 氧化还原酶活性相关基因表达情况;C. 小分子代谢过程相关基因表达情况。A. Gene expression in photosynthesis-related pathways; B. Gene expression related to oxidoreductase activity; C. Gene expression in small molecule metabolic processes. ) 图 9 GO显著富集通路中基因表达情况 Fig. 9 Gene expression profiles in GO significantly enriched pathways |
KEGG富集分析结果表明,差异表达基因共注释于77条代谢通路(见图 10)。其中“甘氨酸-丝氨酸-苏氨酸代谢(Glycine, serine and threonine metabolism)”和“碳代谢(Carbon metabolism)”为富集程度最高的通路(padj<0.01),通路上的基因绝大部分在MCB中显著上调(见图 11和图 12);其他显著富集的通路还有“次级代谢产物生物合成(Biosynthesis of secondary metabolites)”、“氨基酸生物合成(Biosynthesis of amino acids)”等通路(p<0.05),通路上的基因绝大部分在MCB中显著上调(见图 13和图 14),其中次级代谢产物生物合成通路包含的差异基因数目最多(89)。其余显著通路还包括与氧化应激有关的“硫代谢(Sulfur metabolism)”与“谷胱甘肽代谢(Glutathione metabolism)”通路,这些通路上的大部分基因同样在MCB中显著上调(见图 15和图 16)。

|
(点的大小表示富集到的差异基因数目(NEDG),颜色代表显著性水平(padj)。The size of the dots represents the number of enriched differential gene(NEDG), the color indicates the significance level (padj). ) 图 10 KEGG富集气泡图 Fig. 10 KEGG enrichment bubble plot |

|
图 11 碳代谢通路中的基因表达情况 Fig. 11 Gene expression in the carbon metabolism pathway |

|
图 12 丝氨酸-甘氨酸-苏氨酸代谢通路中的基因表达情况 Fig. 12 Gene expression in the serine-glycine-threonine metabolism pathway |

|
图 13 次级代谢产物生物合成通路中的基因表达情况 Fig. 13 Gene expression in the secondary metabolite biosynthesis pathway |

|
图 14 氨基酸生物合成代谢通路中的基因表达情况 Fig. 14 Gene expression in the amino acid biosynthesis pathway |

|
图 15 硫代谢通路中的基因表达情况 Fig. 15 Gene expression in the sulfur metabolism pathway |

|
图 16 谷胱甘肽代谢通路中的基因表达情况 Fig. 16 Gene expression in the glutathione metabolism pathway |
本研究系统比较了不同氮、磷限制下龙须菜的分枝形态变化,本研究设置的9个氮磷组合浓度均远低于龙须菜的正常培养条件(通常氮浓度为10 mg/L、磷浓度为1 mg/L),因此这9组处于不同程度的营养限制状态。结果显示,在氮浓度为1 mg/L、磷浓度为0.1 mg/L、N/P为10的营养条件下,龙须菜产生卷曲形态的异常分枝。
氮和磷都是细胞生长所必需的大量元素,对生物维持基本生命活动具有重要作用。其中氮是构成细胞中所有蛋白质氨基酸的主要成分[26];磷是合成核酸(尤其是核糖体RNA)、三磷酸腺苷、细胞膜以及一些蛋白质所必不可少的元素[27]。氮和磷作为藻类的主要限制性营养盐,对细胞增殖、核酸与蛋白质的合成[28]以及能量代谢[29]具有重要作用。当营养受到限制时,藻类的生理和新陈代谢也会受到影响[30-34]。有研究表明,在缺氮和缺磷的条件下,威氏海链藻和小新月菱形藻生长速率降低[35-36];氮和磷的缺乏还会影响球形棕囊藻(Phaeocystis globosa Scherffel)异型生活史中不同形态细胞的转换,将游离单细胞转化为囊体细胞,启动囊体保护机制[37]。水体的氮磷比能直接影响藻类的生长和生物量积累[38],还会对微藻生物量和群落结构产生显著影响[39]。研究表明,藻类生长的最佳N/P为16∶1,N/P小于16∶1时为氮限制,N/P大于16∶1时为磷限制[40]。当N/P为16∶1时,等鞭金藻的生长速率最快,单位水体的细胞数目最多,细胞中碳水化合物和蛋白质的含量也最高[41],氮限制会影响球形棕囊藻中多糖产量[37];对于大型藻类而言,海带组织成分的积累会受到氮和磷限制的影响[42]。N/P为10时,表明龙须菜可能受到氮限制,氨基酸合成、核酸生成、能量代谢等过程可能受到影响,进而影响到了分枝形态建成。本研究首次在实验室条件下稳定复现了从NB向MCB转变的过程,并进一步揭示营养盐限制可能是诱导这一表型变化的关键因素,该结果为深入探究龙须菜异常分枝发育机制奠定了基础。
显微结构观察显示,低营养盐条件下形成的MCB在细胞组织层面呈现明显异常:表皮细胞层数减少且细胞排列松散,髓部细胞增大且细胞间隙增大,细胞分布不规则,同时色素分布较NB明显变淡。植物器官形态的发生依赖于细胞壁限制决定的细胞形态变化[43],在拟南芥(Arabidopsis thaliana)中,磷缺乏可诱导细胞壁重塑[44],进而导致根毛形态改变。龙须菜细胞壁主要由纤维素、半纤维素、海藻胶(琼胶)、蛋白质等成分组成[45],其合成需要充足的碳氮供应,在低营养盐状态下,细胞壁材料合成不足可能导致细胞壁重塑,细胞形态的改变可能导致分枝形态异常。因此,推测龙须菜分枝形态的改变可能与细胞形态的变化有关。
叶绿素荧光测定结果显示,MCB的QY_max和NPQ均显著低于NB,QY_max代表PSⅡ光合效率,NPQ是植物耗散多余光能的一种保护机制[46]。这一结果意味着藻体不仅在捕获光能方面受到限制,而且在面对过剩光能时的能量耗散机制也受到抑制。光合膜与类囊体是光合作用反应中心的核心结构,包含PSⅠ、PSⅡ、LHC(Light-harvesting complex)及电子传递链等关键组件[47],其结构稳定性直接决定光能捕获、电子传递与光保护能力。而类囊体膜承担了光系统Ⅱ的主要光化学反应,在光能吸收、激发能量转移、电子传递和ATP合成等方面具有重要作用[48]。转录组GO富集结果显示,“光合膜(Photosynthetic membrane)”、“类囊体(Thylakoid)”等与光合作用有关的通路在MCB中均表现为大量基因下调,结合叶绿素荧光测定结果可以得出结论:光合系统整体在异常分枝中普遍受到抑制。同时GO富集结果还显示小分子代谢、有机酸代谢等与能量代谢相关通路显著上调,KEGG富集结果也表明“碳代谢”、“氨基酸合成”以及“次级代谢产物合成”等通路显著富集并以上调为主。综合来看,MCB在光合供能受限的情况下,通过增强碳代谢和小分子代谢途径,可能在一定程度上弥补了能量与代谢中间体的不足,同时加快了氨基酸和次级代谢产物的合成,以维持基本生长和应对低营养盐限制。糖代谢的重编程可能是维持细胞能量平衡与代谢稳态的重要机制[49],为后续的分枝发生提供能量支持。
在低营养条件下,MCB样品中ROS含量显著升高,MDA含量显著上升,SOD、POD和CAT活性明显增强。ROS的升高表明藻体内ROS过量积累、氧化胁迫水平提升,MDA的升高反映细胞膜受到损伤的程度增加[50],SOD、POD和CAT等抗氧化酶能够帮助植物应对逆境胁迫并消除ROS[51]。抗氧化酶系统的机制如下:SOD将过量超氧阴离子自由基(O2·-)歧化生成H2O2和O2,以维持植物体内活性氧稳态,而CAT和POD则有助于进一步清除H2O2 [52]。多种抗氧化酶活性的同步升高表明藻体正在尝试通过清除ROS来缓冲氧化损伤,抗氧化酶活性的增强通常能够有效清除ROS,从而降低膜脂过氧化程度,使丙二醛含量下降。GO分析中“氧化还原酶活性”通路被显著富集,KEGG中“硫代谢”与“GSH代谢”等与氧化还原平衡密切相关的通路也以上调基因为主,硫代谢途径的增强可提高半胱氨酸(Cys)的供应,而Cys是谷胱甘肽(GSH)合成的限速原料[53];GSH是藻类和植物细胞中最重要的非酶抗氧化物质之一,能够直接或通过谷胱甘肽过氧化物酶(Glutathione peroxidase,GPX)清除H2O2及多种ROS[54],因此,硫代谢与GSH代谢的共同上调表明,MCB在营养盐限制下通过增强过氧化物酶活性来对抗过量ROS的侵害。然而,尽管抗氧化酶活与GSH相关代谢均显著上调,MCB仍然存在较高的MDA水平,说明抗氧化体系虽被充分激活,却无法完全抵消ROS的持续累积。
ROS积累是藻类对营养胁迫的典型响应之一[55],植物中的ROS是调节应激反应和维持正常生理功能的重要信号分子[56]。已有研究表明,植物细胞壁重塑可由ROS信号调节[57-58],维持过氧化物酶驱动的ROS稳态对于植物分枝发育至关重要[59]。本研究中抗氧化酶活性升高却仍伴随高水平膜脂过氧化,这说明抗氧化系统虽被显著激活,但无法完全抵消持续产生的ROS,其累积效应可能成为促进异常分枝产生的关键因素。本研究观察到的抗氧化酶活性升高以及相关基因上调,可能不仅是被动响应氧化压力,也可能参与塑造MCB这一异常形态。
结合以上所有结果推测,MCB发生时,光合效率降低,细胞通过加强碳代谢、氨基酸代谢和次级代谢的通路来维持基本代谢,同时显著激活多种氧化还原酶及谷胱甘肽代谢以对抗ROS的积累。但这种代谢和氧化还原调节仍不足以完全维持发育过程的精确性,最终表现为分枝卷曲异常。
4 结语本研究探索出可稳定诱导龙须菜卷曲分枝的营养条件,低营养盐条件下诱导产生的卷曲分枝伴随光合效率下降、能量代谢增强、氧化压力增强等生理活动。转录组与生理结果共同表明,营养盐限制通过影响光合作用、能量代谢、ROS信号,进而影响分枝发育。本研究为理解龙须菜在营养盐限制下的分枝发育调控机制提供了新线索,初步探究了龙须菜异常分枝形成机制,为后续深入探究龙须菜分枝发育的调控机制以及新品系的研发奠定了基础。
| [1] |
Freile-Pelegrín Y, Murano E. Agars from three species of Gracilaria(Rhodophyta) from Yucatán Peninsula[J]. Bioresource technology, 2005, 96(3): 295-302. DOI:10.1016/j.biortech.2004.04.010 (  0) |
| [2] |
Marinho-Soriano E. Agar polysaccharides from Gracilaria species(Rhodophyta, Gracilariaceae)[J]. Journal of Biotechnology, 2001, 89(1): 81-84. DOI:10.1016/S0168-1656(01)00255-3 ( 0) |
| [3] |
Zou D, Xia J, Yang Y. Photosynthetic use of exogenous inorganic carbon in the agarophyte Gracilaria lemaneiformis(Rhodophyta)[J]. Aquaculture, 2004, 237(1): 421-431. ( 0) |
| [4] |
Ren Y, Zheng G, You L, et al. Structural characterization and macrophage immunomodulatory activity of a polysaccharide isolated from Gracilaria lemaneiformis[J]. Journal of Functional Foods, 2017, 33: 286-296. DOI:10.1016/j.jff.2017.03.062 ( 0) |
| [5] |
林彬彬, 唐旭, 汪少芸. 龙须菜蛋白的提取及其功能性质研究[J]. 中国食品学报, 2018, 18(12): 137-143. Lin B B, Tang X, Wang S Y. Studies on extraction of Gracilaria lemaneiformis protein and its properties[J]. Journal of Chinese Institute of Food Science and Technology, 2018, 18(12): 137-143. ( 0) |
| [6] |
费亚芬, 王玉婷, 陆夏逸, 等. 海藻膳食纤维提取工艺优化及其对小鼠肠道菌益生作用[J]. 海南师范大学学报(自然科学版), 2019, 32(1): 54-63. Fei Y F, Wang Y T, Lu X Y, et al. Extraction and optimization of marine algae dietary fiber and its effects on mice intestinal microflora[J]. Journal of Hainan Normal University(Natural Science), 2019, 32(1): 54-63. ( 0) |
| [7] |
Galan A, 张威, 苏秀榕, 等. 浒苔和龙须菜营养成分的研究[J]. 水产科学, 2010, 29(6): 329-333. Galan A, Zhang W, Su X R, et al. Nutrient composition of sea weeds Enteromorpha prolifera and Gracilaria lemaneiformis[J]. Fisheries Science, 2010, 29(6): 329-333. ( 0) |
| [8] |
Wang Z, Wang G, Niu J, et al. Optimization of conditions for tetraspore release and assessment of photosynthetic activities for different generation branches of Gracilaria lemaneiformis Bory[J]. Chinese Journal of Oceanology and Limnology, 2010, 28(4): 738-748. DOI:10.1007/s00343-010-9908-2 ( 0) |
| [9] |
Li P P, Chen H, Zhang J, et al. Characterization of curly branch of Gracilariopsis lemaneiformis(Rhodophyta) at morphological, physiological, and molecular levels[J]. Algal Research, 2022, 64: 102660. DOI:10.1016/j.algal.2022.102660 ( 0) |
| [10] |
Fu M, Fan S, Wang Z, et al. Buoyancy potential of dominant green macroalgal species in the Yellow Sea's green tides, China[J]. Marine Pollution Bulletin, 2019, 140: 301-307. DOI:10.1016/j.marpolbul.2019.01.056 ( 0) |
| [11] |
Luo M, Liu F, Xu Z. Growth and nutrient uptake capacity of two co-occurring species, Ulva prolifera and Ulva linza[J]. Aquatic Botany, 2012, 100: 18-24. DOI:10.1016/j.aquabot.2012.03.006 ( 0) |
| [12] |
Wang Y, Wang Y, Zhu L, et al. Comparative studies on the ecophysiological differences of two green tide macroalgae under controlled laboratory conditions[J]. PLoS One, 2017, 7(8): e38245. ( 0) |
| [13] |
Wang Y, Liu F, Liu X, et al. Comparative transcriptome analysis of four co-occurring Ulva species for understanding the dominance of Ulva prolifera in the Yellow Sea green tides[J]. Journal of Applied Phycology, 2019, 31(5): 3303-3316. DOI:10.1007/s10811-019-01810-z ( 0) |
| [14] |
Lin A, Shen S D, Wang J W, et al. Reproduction diversity of Enteromorpha prolifera[J]. Journal of Integrative Plant Biology, 2008, 50(5): 622-629. DOI:10.1111/j.1744-7909.2008.00647.x ( 0) |
| [15] |
Zhang X, Wang H, Mao Y, et al. Somatic cells serve as a potential propagule bank of Enteromorpha prolifera forming a green tide in the Yellow Sea, China[J]. Journal of Applied Phycology, 2010, 22(2): 173-180. DOI:10.1007/s10811-009-9437-6 ( 0) |
| [16] |
Liu Q, Yu R, Yan T, et al. Laboratory study on the life history of bloom-forming Ulva prolifera in the Yellow Sea[J]. Estuarine, Coastal and Shelf Science, 2015, 163: 82-88. DOI:10.1016/j.ecss.2014.08.011 ( 0) |
| [17] |
Yuan H, Yuan A, Yi Y, et al. Comparative transcriptome analysis between floating and attached Ulva prolifera in studying green tides in the Yellow Sea[J]. Algal Research, 2019, 44: 101712. DOI:10.1016/j.algal.2019.101712 ( 0) |
| [18] |
Hu J, Sun S, Wang X. Regulation of shoot branching by strigolactones and brassinosteroids: Conserved and specific functions of Arabidopsis BES1 and rice BZR1[J]. Molecular Plant, 2020, 13(6): 808-810. DOI:10.1016/j.molp.2020.03.008 ( 0) |
| [19] |
Ma C, Qin S, Cui H, et al. Nitrogen enrichment mediates the effects of high temperature on the growth, photosynthesis, and biochemical constituents of Gracilaria blodgettii and Gracilaria lemaneiformis[J]. Environmental Science and Pollution Research, 2021, 28(17): 21256-21265. DOI:10.1007/s11356-020-11969-5 ( 0) |
| [20] |
Wang Y, Feng Y, Liu X, et al. Response of Gracilaria lemaneiformis to nitrogen deprivation[J]. Algal Research, 2018, 34: 82-96. DOI:10.1016/j.algal.2018.07.005 ( 0) |
| [21] |
Diaz-Pulido G, McCook J L. Effects of nutrient enhancement on the fecundity of a coral reef macroalga[J]. Journal of Experimental Marine Biology and Ecology, 2004, 317(1): 13-24. ( 0) |
| [22] |
Li P P, Chen H H, Zhang J Y, et al. Effects of nutrient deficiency on the branch phenotype of the macroalgae Gracilariopsis lemaneiformis(Rhodophyta)[J]. Aquaculture, 2023, 562: 738794. DOI:10.1016/j.aquaculture.2022.738794 ( 0) |
| [23] |
韩保林, 陶宇, 张洪凯, 等. 水稻叶片内卷突变体rl(t)的鉴定与基因定位[J]. 中国水稻科学, 2017, 31(2): 149-156. Han B L, Tao Y, Zhang H K, et al. Identification and gene mapping of a rolled leaf mutant rl(t) in rice[J]. Chinese Journal of Rice Science, 2017, 31(2): 149-156. ( 0) |
| [24] |
毛建昌, 李发民, 李向拓, 等. 玉米苗期叶片卷曲度配合力分析[J]. 玉米科学, 2005(3): 71-73. Mao J C, Li F M, Li X T, et al. Analysis of combining ability of the leaf roll degree in seedling period of maize[J]. Maize Science, 2005(3): 71-73. ( 0) |
| [25] |
李平霞. 白菜叶片卷曲相关基因的鉴定及初步分析[D]. 南昌: 江西农业大学, 2013. Li P X. Identification and Analysis of Leaf Curvature Related Genes in Brassica rapa[D]. Nanchang: Jiangxi Agricultural University, 2013. ( 0) |
| [26] |
Liefer J, Garg A, Fyfe M, et al. The macromolecu lar basis of phytoplankton C: N: P under nitrogen star vation[J]. Frontiers in Microbiology, 2019(10): 763. ( 0) |
| [27] |
Toseland A, Daines S, Clark J, et al. The impact of temperature on marine phytoplankton resource allocation and metabolism[J]. Nature Climate Change, 2013, 3(11): 979-984. DOI:10.1038/nclimate1989 ( 0) |
| [28] |
Zhou W, Sui Z H, Wang J Y, et al. Effects of sodium bicarbonate concentration on growth, photosynthesis, and carbonic anhydrase activity of macroalgae Gracilariopsis lemaneiformis, Gracilaria vermiculophylla, and Gracilaria chouae(Gracilariales, Rhodophyta)[J]. Photosynthesis Research, 2016, 128(3): 259-270. DOI:10.1007/s11120-016-0240-3 ( 0) |
| [29] |
de Groot C C, Marcelis L F M, van den Boogaard R, et al. Interaction of nitrogen and phosphorus nutrition in determining growth[J]. Plant and Soil, 2003, 248(1-2): 257-268. DOI:10.1023/A:1022323215010 ( 0) |
| [30] |
Zhang Y, Chen H, Chen L, et al. Nitrogen starvation induced oxidative stress in an oil-producing green alga Chlorella sorokiniana C3[J]. PLoS One, 2013, 8(7): e69225. DOI:10.1371/journal.pone.0069225 ( 0) |
| [31] |
Valledor L, Furuhashi T, Recuenco-Muñoz L, et al. System-level network analysis of nitrogen starvation and recovery in Chlamydomonas reinhardtii reveals potential new targets for increased lipid accumulation[J]. Biotechnology for Biofuels, 2014, 7: 171. DOI:10.1186/s13068-014-0171-1 ( 0) |
| [32] |
Liefer J D, Garg A, Campbell D A, et al. Nitrogen starvation induces distinct photosynthetic responses and recovery dynamics in diatoms and prasinophytes[J]. PLoS One, 2018, 13(4): e0195705. DOI:10.1371/journal.pone.0195705 ( 0) |
| [33] |
Li G, Campbell D A. Interactive effects of nitrogen and light on growth rates and RUBISCO content of small and large centric diatoms[J]. Photosynthesis Research, 2017, 131(1): 193-203. ( 0) |
| [34] |
Huang B, Marchand J, Blanckaert V, et al. Nitrogen and phosphorus limitations induce carbon partitioning and membrane lipid remodelling in the marine diatom Phaeodactylum tricornutum[J]. European Journal of Phycology, 2019, 54(3): 342-358. DOI:10.1080/09670262.2019.1567823 ( 0) |
| [35] |
钟玥, 苏永昌, 陈由强, 等. 不同氮、磷营养盐对威氏海链藻生长和岩藻黄素积累的影响[J]. 渔业研究, 2022, 44(6): 541-551. Zhong Y, Su Y C, Chen Y Q, et al. The effects of different nitrogen and phosphorus nutrients on the growth and fucoxanthin accumulation in Thalassiosira weissflogii[J]. Journal of Fisheries Research, 2022, 44(6): 541-551. ( 0) |
| [36] |
夏建荣, 黄瑾. 氮、磷对小新月菱形藻无机碳利用与碳酸酐酶活性的影响[J]. 生态学报, 2010, 20(15): 4085-4092. Xia J R, Huang J. Impacts of nitrogen and phosphorus on inorganic carbon utilization and carbonic anhydrase activity in Nitzschia closterium f. minutissima[J]. Acta Ecologica Sinica, 2010, 20(15): 4085-4092. ( 0) |
| [37] |
傅云飞. 球形棕囊藻不同株系对营养盐胁迫的响应研究[D]. 南宁: 广西大学, 2023. Fu Y F. Research on the Response of Different Strains of Phaeocystis globosato Nutrient Stress[D]. Nanning: Guangxi University, 2023. ( 0) |
| [38] |
王英英. 不同氮磷质量浓度对太浦河四种优势藻类生长影响的研究[D]. 上海: 上海师范大学, 2016. Wang Y Y. Study on the Effects of Different Nitrogen and Phosphorus Concentrations on the Growth of Four Dominant Algal Species in Taipu River[D]. Shanghai: Shanghai Normal University, 2016. ( 0) |
| [39] |
Dou Y, Tang X X, Yang Z, et al. Effect of nutrients structure on primary production in offshore of Shandong province[J]. Marine Environmental Science, 2011, 30(2): 177-181. ( 0) |
| [40] |
Lenton T M, Watson A J. Redfield revisited: 1. Regulation of nitrate, phosphate, and oxygen in the ocean[J]. Global Biogeochemical Cycles, 2000, 14(1): 225-248. DOI:10.1029/1999GB900065 ( 0) |
| [41] |
刘东艳, 孙军, 巩晶, 等. 不同氮、磷比例对球等鞭金藻生长的影响[J]. 海洋水产研究, 2002(1): 29-32. Liu D Y, Sun J, Gong J, et al. Effects of different nitrogen and phosphorus ratios on the growth of Platymonas subcordiformis[J]. Marine Fisheries Research, 2002(1): 29-32. ( 0) |
| [42] |
白露. 海带(Saccharina japonica)病害的调查及幼苗绿烂的病因分析[D]. 上海: 上海海洋大学, 2020. Bai L. Diseases Investigation of Saccharina japonica and Cause Analysis of Seedlings Green Rot[D]. Shanghai: Shanghai Ocean University, 2020. ( 0) |
| [43] |
Xiong Y, Wu B, Du F, et al. A crosstalk between auxin and brassinosteroid regulates leaf shape by modulating growth anisotropy[J]. Molecular Plant, 2021, 14(6): 949-962. DOI:10.1016/j.molp.2021.03.011 ( 0) |
| [44] |
Liao Y, Buckhout T, Schmidt W. Phosphate deficiency-induced cell wall remodeling: Linking gene networks with polysaccharide meshworks[J]. Plant Signaling & Behavior, 2011, 6(5): 700-702. ( 0) |
| [45] |
刘燕. 龙须菜的发酵及发酵龙须菜对黑鲷生长、免疫和抗氧化能力的影响[D]. 广州: 华南农业大学, 2016. Liu Y. Fermentation of Gracilariopsis lemaneiformis and Effects of Fermented Gracilariopsis lemaneiformis on Growth, Immunity, and Antioxidant Capacity of Black Seabream(Acanthopagrus schlegelii)[D]. Guangzhou: South China Agricultural University, 2016. ( 0) |
| [46] |
Miyake C, Horiguchi S, Makino A, et al. Effects of light intensity on cyclic electron flow around PSI and its relationship to non-photochemical quenching of Chl fluorescence in tobacco leaves[J]. Plant & Cell Physiology, 2005, 46(11): 1819-1830. ( 0) |
| [47] |
Zhou L, Ye Y. Assembly of the photosystem Ⅱ reaction center, the heart of photosynthesis[J]. Plant Physiology, 2022, 189(2): 438-440. DOI:10.1093/plphys/kiac083 ( 0) |
| [48] |
Giulia A. Molecular mechanism of how the optimization of chloroplast thylakoid membrane structure facilitates efficient photosynthesis[J]. Cell Biology Research, 2025, 6(1): 28-33. ( 0) |
| [49] |
Nogueira M, Enfissi E, Price E, et al. Ketocarotenoid production in tomato triggers metabolic reprogramming and cellular adaptation: The quest for homeostasis[J]. Plant Biotechnology Journal, 2023, 22(2): 427-444. ( 0) |
| [50] |
Yang H F, Wang Y Q, Zhou H, et al. Single and combined effects of microplastics and cadmium on oxidative responses, antioxidant system and cadmium phytoavailability of Chinese cabbage(Brassica campestris L.)[J]. Bulletin of Environmental Contamination and Toxicology, 2025, 115(5): 55. DOI:10.1007/s00128-025-04131-9 ( 0) |
| [51] |
Pan C, Lu H, Liu J, et al. SODs involved in hormone-mediated regulation of H2O2 content in Kandelia obovata root tissues under cadmium stress[J]. Environmental Pollution, 2020, 256: 113272. DOI:10.1016/j.envpol.2019.113272 ( 0) |
| [52] |
Weckx J E J, Clijsters H M M. Oxidative damage and defense mechanisms in primary leaves of Phaseolus vulgaris as a result of root assimilation of toxic amounts of copper[J]. Physiologia Plantarum, 1996, 96(3): 506-512. DOI:10.1111/j.1399-3054.1996.tb00465.x ( 0) |
| [53] |
Zhang H Y, Chen J D, Wang W, et al. Integrated transcriptomic and metabolomic analysis reveals the molecular mechanisms of cadmium stress response in rapeseed(Brassica napus L.): Insights into glutathione and sulfur metabolism pathways[J]. Industrial Crops & Products, 2025, 237: 122187. ( 0) |
| [54] |
鲁佩瑶, 臧宇, 薛颂, 等. 鼠尾藻活性氧清除系统对UV-B辐射增强的性别差异响应特征[J]. 中国海洋大学学报(自然科学版), 2022, 52(8): 52-59. Lu P Y, Zang Y, Xue S, et al. Sex-specific response characteristics of the reactive oxygen species scavenging system in Sargassum thunbergii to enhanced UV-B radiation[J]. Periodical of Ocean University of China, 2022, 52(8): 52-59. DOI:10.16441/j.cnki.hdxb.20210224 ( 0) |
| [55] |
Jithesh V, Nishikant W, Kan L, et al. ROS-mediated thylakoid membrane remodeling and triacylglycerol biosynthesis under nitrogen starvation in the alga Chlorella sorokiniana[J]. Frontiers in Plant Science, 2024, 15: 1418049. DOI:10.3389/fpls.2024.1418049 ( 0) |
| [56] |
Ron M. ROS are good[J]. Trends in Plant Science, 2017, 22(1): 11-19. DOI:10.1016/j.tplants.2016.08.002 ( 0) |
| [57] |
Zhang J, Qian Y, Chen Z, et al. Lead-induced oxidative stress triggers root cell wall remodeling and increases lead absorption through esterification of cell wall polysaccharides[J]. Journal of Hazardous Materials, 2020, 385: 121524. DOI:10.1016/j.jhazmat.2019.121524 ( 0) |
| [58] |
Miroslaw K, Karolina C, Jolanta K, et al. Accumulation of peroxidase-related reactive oxygen species in trichoblasts correlates with root hair initiation in barley[J]. Journal of Plant Physiology, 2013, 170(2): 185-195. DOI:10.1016/j.jplph.2012.09.017 ( 0) |
| [59] |
Kwon T, Sparks J, Nakashima J, et al. Transcriptional response of Arabidopsis seedlings during spaceflight reveals peroxidase and cell wall remodeling genes associated with root hair development[J]. American Journal of Botany, 2015, 102(1): 21-35. DOI:10.3732/ajb.1400458 ( 0) |