 2026, Vol. 56


红树林是指分布于热带亚热带海岸的木本植物群落,是兼备陆地和海洋特性的复杂湿地生态系统[1]。作为全球生产力最高的生态系统之一[2],红树林在维持滨海湿地生产力、支撑生物多样性、保障环境及海岸安全等方面至关重要,是推进中国海洋生态文明建设的核心内容之一[3]。广西壮族自治区红树林资源占全国红树林总资源的34.7%,是中国第二大红树林分布区[4]。其中,北海市红树林面积约占广西红树林总面积的三分之一[5]。海榄雌(Avicennia marina)为马鞭草科红树,具有强大的适应性、耐受性和生命力,作为生态幅较宽的先锋树种,它有海上“马尾松”之称[6-7]。该树种是广西分布面积最广的红树林树种,也是中国乃至全球分布面积最广的红树林树种之一[8],可生长于其他红树林树种较难生长的裸滩,因而在湿地生态修复与人工造林中常被作为优先考虑的树种[9]。
自由生活海洋线虫(以下简称海洋线虫)作为小型底栖动物的优势类群,不仅在生态系统的过程和功能中具有重要作用[10],同时因生活周期短、繁殖快以及对环境变化较为敏感,常被视为反映生态系统健康状况的“哨兵”[11]。其群落多样性指数和分布格局的变化,可作为监测环境的有效生物指标[12]。然而,仅依赖分类学的群落分析方法不足以解释海洋线虫在生态系统中的全部作用[13]。因此,将功能性状纳入研究,对于解释环境变化及人类活动对底栖生态系统的影响同样至关重要[14]。De Ley等[15]也建议,在环境评价中应纳入功能特性进行分析。功能性状是指生物体的形态、生理等能够直接影响其生长、繁殖和生存能力的特征[16]。海洋线虫的体型参数是常用的功能性状之一,其与运动能力、能量需求以及抗逆性密切相关。由于可以通过非破坏性方法测量它们的长度和宽度,已有诸多研究将线虫的形态特征作为反映环境条件的指示指标[17],尤其是在氧气供应、资源可利用性、沉积物类型或生境等方面[18-21]。此外,根据海洋线虫的口部形态可以推测其食性,进而推测其营养方式和所处生态位[22],这对于理解海洋线虫在物质循环中的功能具有重要意义。
本研究选取广西北海三处以典型红树植物海榄雌为主的红树林分布区(垌尾红树林保护区、竹林红树林保护区和金海湾红树林生态保护区),对其沉积物中海洋线虫的群落结构和功能性状开展研究,探究海榄雌林沉积物中海洋线虫群落与其栖息环境的适应关系,了解红树林海洋线虫群落结构和功能性状对生境异质性的响应模式,从而为广西红树林的开发利用和保护提供科学依据。
1 材料与方法 1.1 研究区域和野外采样本研究于2021年9月在广西北海选取三处成片、面积较大的海榄雌分布区作为采样区域,这三处海榄雌林环绕北海市海岸线分布,分别位于垌尾红树林保护区(109°9′12″E,21°33′28″N)、竹林红树林区(109°18′21″E,21°26′46″N)和金海湾红树林生态保护区(109°11′48″E,21°25′10″N),如图 1所示。其中垌尾红树林保护区和竹林红树林区为开阔海岸型红树林,直接受波浪和海流冲刷影响[23];金海湾红树林生态保护区位于广西最大内陆潮汐河流——冯家江的入海口,受陆地水文与人类活动影响,同时还是中国红树林生态旅游开发的主要区域之一[24]。

|
(底图使用审图号为GS(2024)0650号的标准地图。The based map uses the standard map with the review number GS(2024)0650. ) 图 1 研究区域采样站位图 Fig. 1 Map of the sampling stations in the study area |
在每处海榄雌林各布设2个站位,两个站位间隔约20 m,共6个站位,在垌尾红树林保护区的两个站位为D-1、D-2;在竹林红树林区的两个站位为Z-1、Z-2;在金海湾红树林生态保护区的两个站位为J-1、J-2。用内径2.9 cm的采样管(注射器改装)在每个站位采集6个沉积物芯样,按照0~2、2~5和5~10 cm进行垂直分层,其中4个用于小型底栖动物和海洋线虫分析,2个用于沉积环境因子分析。所有样品均装入塑料密封袋中,于-20 ℃冰箱中冷冻保存,并运输回实验室进行后续分析。
1.2 生物样品分析将用于海洋线虫群落分析的沉积物样品依次冲洗通过孔径为500和31 μm的双层套筛,用Ludox-TM溶液(密度为1.15 g/cm3)将31 μm孔径网筛截留的样品冲洗至离心管中,放入离心机中,1 800 r/min离心10 min,收集上清液,重复该过程3次。将收集到的上清液再次通过31 μm的网筛,自来水冲洗上清液,并将网筛截留的生物缓缓冲回100 mL样品瓶中,加入1‰虎红荧光染色剂和5%甲醛溶液,混合均匀并静置24 h,以充分染色。染色后,将样品冲洗至培养皿中进行小型底栖动物的分选计数。从分选获得的海洋线虫中随机选取200条,将虫体透明化并制成永久封片。
利用Olympus BX-51型微分干涉显微镜对永久封片进行海洋线虫的鉴定,将其鉴定至种水平(以sp.1、sp.2表示)。根据海洋线虫的口腔形态,将其划分为4种摄食类型:1A型,选择性沉积食性者;1B型,非选择性沉积食性者;2A型,刮食者或硅藻摄食者;2B型,捕食者或杂食者[22],从摄食与营养角度分析海洋线虫对环境的适应;利用ScopeImage测量软件对每一条海洋线虫的体长(L)、最大体宽(W)和咽长进行测量,并计算体长-体宽比值(L/W),从体型与运动角度分析海洋线虫对环境的适应。
1.3 沉积物样品分析沉积物样品分析包括沉积物叶绿素a(Chlorophyll a, Chl a)含量、脱镁叶绿酸a(Pheophorbide a, Pheo a)含量、有机碳含量、水解单宁含量测定及沉积物粒度分析。采用荧光分光光度计法(Turner Designs,F96Pro)测定Chl a含量和Pheo a含量[25];采用重铬酸钾氧化-还原法,根据氧化-还原反应的基本原理,利用消耗硫酸亚铁标准溶液的体积求得样品中有机碳含量[26];采用福林酚-比色法测定沉积物中水解单宁含量[27]。采用激光粒度法分析沉积物粒度,并计算沉积物中值粒径和分选系数(σ)。其中对粒径数据进行log2转换预处理,将粒径从毫米线性尺度转换为对数(log2)尺度(φ)[28],则中值粒径可表示为φ50,即累计曲线上50%对应的粒径。分选系数的计算式为
| $ \sigma = ({\varphi _{{\rm{84}}}} - {\varphi _{{\rm{16}}}}){\rm{ }}/{\rm{ 4 }} + ({\varphi _{{\rm{95}}}} - {\varphi _{\rm{5}}}){\rm{ }}/{\rm{ 6}}{\rm{.6}}。$ | (1) |
式中φ84、φ16、φ95、φ5分别为累积曲线上84%、16%、5%、95%对应的粒径[29]。
1.4 数据分析线虫的丰度以单位面积(10 cm2)沉积物中海洋线虫个体数来表示(ind./10 cm2)。利用ArcGIS Pro绘制采样区域站位图。利用SPSS 27.0软件进行单因素方差分析以及多重比较(Multiple comparisons,LSD)分析检验,以确定环境因子数据和生物数据在三处采样区域间的差异;对数据是否满足正态分布进行Kolmogorov-Smirnov(K-S)检验,对于不满足正态分布的数据,则采用Kruskal-Wallis非参数检验和Tamhane’s T2事后多重比较确定其差异是否显著[27]。利用PRIMER 7.0软件及PERMANOVA附加软件包进行多元统计分析,包括:对环境因子进行主成分分析(Principal component analysis,PCA);对海洋线虫物种组成进行非度量多维尺度(Non-metric multidimensional scaling,nMDS)分析;计算海洋线虫的多样性指数;基于距离的线性模型(Distance-based linear model,DistLM)分析环境因子与海洋线虫丰度、物种组成、摄食类型、多样性指数以及体型参数的相关性;通过置换多元方差分析(Permutation multiple analysis of variance,PERMANOVA)确定不同采样点群落结构的差异,同时进行离散度同质性检验(Homogeneity test for dispersion,PERMDISP)以确定差异是否由组内样本离散度的同质性引起。
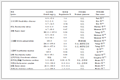
2 结果 2.1 环境因子分析本研究中各站位环境因子如表 1所示。垌尾海榄雌林的中值粒径φ50、粉砂黏土含量和有机质含量均高于其他站位,最高值分别为7.40、93.80%和5.19%,位于D-1站位;Chl a含量和Pheo a含量均为最低,分别为0.19和0.42 μg/g,位于D-2站位。与之对应,竹林海榄雌林的中值粒径φ50、粉砂黏土含量和有机质含量均最低,中值粒径和粉砂黏土含量的最小值位于Z-1站位,分别为3.80和48.51%;有机质含量的最小值位于Z-2站位,为1.39%;Z-1站位的Chl a含量最高,为0.77 μg/g。但Pheo a含量的最大值位于J-1站位,为1.31 μg/g。分选系数的平均值为2.61,变化范围为1.95~2.97。水解单宁含量的平均值为1.02 mg/g,变化范围为0.01~1.67 mg/g。单因素方差分析结果表明,水解单宁含量在三处海榄雌林间存在极显著差异(p<0.01),分选系数和有机质含量存在显著差异(p<0.05),其余环境因子的差异未达到显著水平(p > 0.05)。然后进行LSD,其结果表明,竹林海榄雌林的水解单宁含量极显著低于其他两地(p<0.01),有机质含量显著低于其他两地(p<0.05),垌尾海榄雌林的分选系数显著低于其他两地(p<0.05)。Pearson相关性分析结果表明,三处海榄雌林沉积物中水解单宁含量与有机质含量均显著正相关(p<0.05)。
|
表 1 研究站位环境因子 Table 1 Environmental factors of study stations |
各站位环境因子的主成分分析结果如图 2所示,第一主成分(PC1)轴和第二主成分(PC2)轴可解释79.2%的环境变异度。其中PC1能解释56.7%的环境变异,粉砂黏土含量(-0.927)、中值粒径(-0.853)、有机质含量(-0.832)和水解单宁含量(-0.756)与PC1负相关,Chl a含量(0.764)和分选系数(0.718)均与PC1正相关;PC2轴能解释22.5%的环境变异,与PC2轴相关性较高的依次为Pheo a含量(-0.946)、Chl a含量(-0.540)、水解单宁含量(-0.455)和有机质含量(-0.406)。

|
(蓝色圆圈和线条为叠加向量,向量表示变量与主成分的原始皮尔逊相关系数。各环境因子变量符号描述同表 1表注。Blue circle and lines are superimposed vectors, Vectors are the raw Pearson correlations of variables with the principal components. The symbol descriptions of environmental factor variables are the same as notes in table 1. ) 图 2 研究站位环境因子PCA结果 Fig. 2 PCA result of environmental factors in the study stations |
本研究中各站位海洋线虫丰度分布如图 3所示,三处海榄雌林中海洋线虫的总平均丰度为(512.99±402.92) ind./10 cm2,各采样点平均丰度表现为竹林(1 016.00±199.69) ind./10 cm2 >金海湾(339.68±137.90) ind./10 cm2>垌尾(183.28±118.36) ind./10 cm2。其中,Z-2站位的平均丰度最高,为(1 173.16±80.33) ind./10 cm2,D-1站位的平均丰度最低,为(136.33±55.70) ind./10 cm2。单因素方差分析结果显示,海洋线虫的丰度在不同采样点间存在极显著差异(p<0.01),LSD结果进一步表明,竹林海榄雌林中海洋线虫的丰度极显著高于其他两处(p<0.01)。

|
图 3 海洋线虫丰度分布 Fig. 3 Distribution of marine nematode abundance |
海洋线虫的物种数(S)、Margalef物种丰富度指数(d)、Pielou物种均匀度指数(J′)、Shannon-Wiener多样性指数(H′)及Simpson多样性指数(1-λ)的最高值均位于Z-2站位,最低值均位于D-1站位(见表 2)。单因素方差分析结果显示,三处海榄雌林海洋线虫群落的S和d均存在显著差异(p<0.05),H′、J′和1-λ差异不显著(p>0.05)。进一步进行LSD,结果表明,竹林海榄雌林海洋线虫群落的S和d显著高于其他两处海榄雌林(p<0.05)。
|
|
表 2 海洋线虫群落的多样性指数 Table 2 Diversity indices of marine nematode communities |
本研究共鉴定出海洋线虫28科54属132种。其中,有条线虫科(Linhomoeidae)为垌尾、竹林和金海湾三处海榄雌林的共有优势科(优势度≥5%),优势度分别为34.57%、5.53%和26.93%。垌尾海洋线虫的优势科依次为有条线虫科(Linhomoeidae,34.57%)、单宫线虫科(Monhysteridae,26.45%)和隆唇线虫科(Xyalidae,16.47%);竹林海洋线虫的优势科依次为链环线虫科(Desmodoridae,21.29%)、色矛线虫科(Chromadoridae,16.76%)、隆唇线虫科(Xyalidae,8.57%)、尖口线虫科(Oxystominidae,7.56%)、微咽线虫科(Microlaimidae,7.40%)、囊咽线虫科(Sphaerolaimidae,6.07%)、有条线虫科(Linhomoeidae,5.53%)和杯咽线虫科(Cyatholaimidae,5.22%);金海湾海洋线虫的优势科依次为单宫线虫科(Monhysteridae,42.22%)、有条线虫科(Linhomoeidae,26.93%)和链环线虫科(Desmodoridae,13.33%)。
各站位海洋线虫的优势属(优势度≥5%)如表 3所示。其中,垌尾和金海湾海榄雌林海洋线虫的优势属高度重合,二者共有的优势属为双口咽线虫属(Diplolaimella)和微口线虫属(Terschellingia)。垌尾海洋线虫的优势属依次为微口线虫属(Terschellingia,33.65%)、拟双口咽线虫属(Diplolaimelloides,15.29%)、棘刺线虫属(Theristus,11.76%)和双口咽线虫属(Diplolaimella,11.53%);金海湾海洋线虫的优势属依次为双口咽线虫属(Diplolaimella,40.81%)、微口线虫属(Terschellingia,25.85%)和螺旋线虫属(Spirinia,10.63%);竹林海洋线虫的优势属依次为瘤咽线虫属(Molgolaimus,8.79%)、折咽线虫属(Ptycholaimellus,8.20%)、离丝线虫属(Aponema,7.22%)和囊咽线虫属(Sphaerolaimus,6.19%)。
|
|
表 3 研究站位海洋线虫的优势属(优势度≥5%)及其优势度 Table 3 Dominant genera (dominance≥5%) and their dominance of marine nematodes of study stations |
利用海洋线虫物种组成的nMDS排序结果展示三处海榄雌林研究站点各自聚集(见图 4),海洋线虫的物种组成存在空间差异。在相关性系数为0.8的水平上,导致群落分化的主要物种包括微口线虫属(Terschellingia)、瘤咽线虫属(Molgolaimus)、双口咽线虫属(Diplolaimella)和后合咽线虫属(Metadesmolaimus)等。PERMANOVA分析结果表明,三处海榄雌林海洋线虫的群落结构存在极显著差异(F = 5.521,p=0.001),PERMDISP检验结果进一步表明,组内样本离散度无显著差异(p= 0.311)。两两比较结果显示,竹林海榄雌林海洋线虫群落的物种组成显著不同于垌尾和金海湾(p<0.05)。

|
(线虫数据经标准化和二次方根转换。叠加的向量表征各物种与nMDS排序轴的相关性, 这些向量对应的物种即为区分不同群落的关键指示种。Nematode data were standardized and square-root transformed. Correlation of species with nMDS ordination represented by overlaid vectors; the species associated with these vectors are identified as the key indicator species that discriminate among the communities. ) 图 4 海洋线虫群落的非度量多维尺度分析 Fig. 4 Non-metric multidimensional scaling analysis of marine nematode communities |
本研究共测量1 857条海洋线虫的体型参数。K-S检验结果表明,海洋线虫的体长、最大体宽、咽长和体长-体宽比值均不符合正态分布(p<0.01)。因此,本研究采用中位数代表各站位以及各采样点海洋线虫的体型参数(见表 4)。J-1站位海洋线虫的体长、最大体宽以及咽长均最小,J-2站位海洋线虫的体长-体宽比值最小,D-1站位海洋线虫的体长最大,体长-体宽比值的最大值位于D-2站位,最大体宽和咽长的最大值均位于Z-2站位(见图 5)。Kruskal Wallis非参数检验结果表明,体长、最大体宽、咽长以及体长-体宽比值在三处海榄雌林间均存在极显著差异(p<0.01,见表 5)。Tamhane’s T2多重比较结果进一步证实,金海湾海榄雌林海洋线虫的各体型参数均最小,其中体长和咽长极显著小于垌尾和竹林(p<0.01),最大体宽极显著小于垌尾(p<0.01),体长-体宽比值极显著小于竹林(p<0.01)。
|
|
表 4 海洋线虫各体型参数的中位数 Table 4 Median value of every body size parameter of marine nematode |

|
(水平线:中位数;箱体:四分位距;垂直线:非异常值范围;圆点:异常值。Horizontal lines: Median; Boxes: Interquartile range; Vertical lines: Non-outlier range; Dots: Outlier values. ) 图 5 海洋线虫体长(a)、最大体宽(b)、体长-体宽比值(c)及咽长(d) Fig. 5 The body length (a), maximum body width (b), body length-width ratio (c) and esophageal length (d) of marine nematodes |
|
|
表 5 海洋线虫体型参数的Kruskal-Wallis检验 Table 5 Kruskal-Wallis test of marine nematodes' body size parameters |
三处海榄雌林海洋线虫群落的摄食类型组成存在一定差异(见图 6)。垌尾海洋线虫群落各摄食类型占比依次为1B (47.29%)>1A (37.41%)>2A (11.29%)>2B (4.00%),竹林海洋线虫群落表现为1B (40.23%)>2A (25.46%)>1A (20.36%)>2B (13.95%),金海湾海洋线虫群落表现为1B (52.62%)>1A (38.45%)>2A (6.69%)>2B (2.23%)。除D-1站位以1A型(68.80%) 为主、Z-2站位以2A型(32.66%) 为主以外,其他各站位均以1B型为主。对4种摄食类型单独进行单因素方差分析,结果表明,只有2B型海洋线虫占比情况在三处海榄雌林间存在显著差异(p<0.05),其他各摄食类型占比均不存在显著差异(p>0.05)。LSD结果表明,竹林海榄雌林中2B型海洋线虫的占比极显著高于金海湾(p<0.01),显著高于垌尾(p<0.05)。

|
图 6 海洋线虫摄食类型组成 Fig. 6 Proportion of feeding types of marine nematodes |
DistLM检验结果显示(见表 6),有机质含量是三处海榄雌林海洋线虫丰度、S、d、J′、H′和1-λ的显著影响因子(p<0.05)。有机质含量还是影响海洋线虫体长的显著环境因子(p<0.05),此外,海洋线虫体长还与粉砂黏土含量显著相关(p<0.05);单宁含量是影响海洋线虫群落物种组成和最大体宽的显著影响因子(p<0.05),分别解释了54.2%和75.8%的变异;同时,最大体宽还受分选系数的显著影响(p<0.05);海洋线虫体长-体宽比值的变化也与分选系数显著相关(p<0.05)。
|
|
表 6 海洋线虫群落特征和功能性状的DistLM检验结果 Table 6 Results of the DistLM sequential test for marine nematode community characteristics and functional traits |
广西三处海榄雌林沉积物中的海洋线虫在群落结构(丰度、多样性和物种组成)及功能性状(体型参数和摄食类型)上呈现显著的空间差异,其主要原因在于环境因素的异质性。特别是有机质含量与海洋线虫丰度和多样性指数显著相关,是导致海洋线虫体型参数空间分异的关键因素;单宁含量则是引起海洋线虫群落物种组成空间分异的重要因素;沉积物有机质含量、粉砂黏土含量、单宁含量和分选系数均是影响海洋线虫体长、最大体宽、体长-体宽比值等体型参数空间分异的重要因素。
3.1 沉积物有机质含量对海洋线虫群落的影响沉积物中有机质含量会对海洋线虫群落产生双重影响。一方面,有机质可作为营养物质直接促进海洋线虫的增殖[30]。向秋茄的无菌沉积物添加其落叶(有机质来源)后,海洋线虫丰度随有机质含量升高而显著增加[31];在有机质含量高的海桑林沉积物中,尤其是其有机质及富集的上层沉积物中,线虫丰度最高[32]。红树林丰富的有机质碎屑是海洋线虫的主要食物来源之一,本研究中以有机碎屑为食的沉积食性者(1A和1B型)在群落中占绝对优势,进一步证实了有机质输入对群落组成的影响。另一方面,有机质的积累会导致微生物大量繁殖,造成沉积环境缺氧,从而对海洋线虫产生抑制作用[33]。本研究表明,海洋线虫的丰度与多样性指数均与有机质含量显著负相关:有机质含量最低的竹林海榄雌林,海洋线虫丰度和多样性均最高;而有机质含量最高的垌尾海榄雌林,二者均最低。此外,有机质分解过程中大量繁殖的微生物也构成海洋线虫另一重要的食物来源,进而影响其摄食结构,使其口腔微小,仅能摄入细菌及细菌粒径级别的食物颗粒的选择性沉积食性者(1A)[34],如Terschellingia,在富含有机质的沉积环境中优势度增加[35]。以上结果表明,有机质输入对线虫群落具有重要影响:自然状态下,该生境线虫群落以有机碎屑为食的沉积食性类群为主;但随着沉积物中有机物质的积累、微生物繁殖、缺氧生境的出现,最终导致耐受低氧环境的细菌食性线虫占比增加,线虫群落的总丰度和多样性同步下降。
3.2 沉积物水解单宁对海洋线虫群落的影响单宁是红树产生的一种次生代谢物质,通过根系分泌和凋落叶的浸出进入沉积环境,是影响线虫群落的重要因素[36]。本研究中,单宁含量是引起三处红树林海洋线虫物种组成差异的显著因素。单宁含量会对线虫产生直接毒性效应:Katiki等[37]发现,秀丽隐杆线虫(Caenorhabditis elegans)用20和25 mg/mL剂量的水解单宁处理24 h后,会出现死亡现象;Alongi[38]发现,在澳大利亚的5个红树林河口,中潮带和低潮带几乎所有优势小型底栖生物类群都与沉积物单宁浓度负相关。这与本研究结果相同,即随着单宁含量的升高,海洋线虫多样性降低。
单宁含量也会对海洋线虫产生间接作用。一方面,单宁会促进某些参与固氮和有机物分解的微生物生长[39],从而为细菌食性的海洋线虫提供更加丰富的食物资源。本研究中,在单宁含量高的垌尾,其细菌食性的海洋线虫优势度明显上升:除上文提到的1A型海洋线虫Terschellingia外,以细菌为食的Theristus也呈现较高优势度(>20%);Diplolaimelloides和Diplolaimella两个属同样以细菌为食,常在红树林叶片碎屑系统中占优势[34, 40-41],这两个属在单宁含量较高的垌尾和金海湾海榄雌林中,也处于优势地位。另一方面,单宁会破坏藻类叶绿素并抑制其生长,从而限制以底栖硅藻和其他微藻为食的海洋线虫的食物来源[42]。在单宁含量最低的竹林海榄雌林中,以底栖硅藻和其他微藻为食的2A型海洋线虫占比较高。同时,该地海洋线虫的咽长是最长的,海洋线虫的咽长通常与摄食效率相关[43],长食道有助于线虫消化较大的食物颗粒[43],如藻类碎片等。尽管本研究中海洋线虫的咽长未表现出与任何环境因子显著相关,但DistLM检验结果表明,单宁含量可解释咽长57.8%的变异度。这从另一个角度揭示了单宁含量通过限制食物资源,间接影响海洋线虫的摄食适应性。
本研究还发现,单宁含量与海洋线虫最大体宽显著负相关,这也可以从食物资源限制角度加以解释。食物资源是影响线虫体型的重要因素,沉积物中有机质含量、Chl a含量和Pheo a含量可以代表海洋线虫的食物来源[44]。竹林海榄雌林中上述指标均最低,处于相对寡营养的环境状态。而在寡营养环境中,线虫可能会促进储存物质的分配,从而导致线虫宽度增加[33]。本研究结果与此观点一致,在营养相对受限的竹林海榄雌林,海洋线虫表现出体型较宽的特征。
3.3 沉积物粒度特征对海洋线虫群落的影响在本研究中,沉积物粒度特征(粉砂黏土含量和分选系数)与海洋线虫体型参数的显著相关性值得关注。沉积物粒度主要通过两个途径对海洋线虫产生影响:一方面,沉积物颗粒的粗细决定了海洋线虫的栖息空间与生活方式,可直接作用于海洋线虫的形态;另一方面,沉积物粒度通过调控有机质含量、单宁含量以及氧气条件等环境因子,间接作用于海洋线虫的形态特征。
海洋线虫的体长与粉砂黏土含量和有机质含量显著相关。通常,细沉积物颗粒伴随高有机质含量[33],而此环境条件下的线虫个体一般具有更长的体型[18]。这一规律在垌尾海榄雌林得到体现:其沉积物为黏土质粉砂,有机质含量最高,海洋线虫体型最长。然而,在同样具有较高粉砂含量与有机质水平的金海湾海榄雌林,海洋线虫却表现出最短的体长,这一现象与以往研究存在差异。不过,从物种组成的角度看,垌尾和金海湾海榄雌林中占优势的线虫属(Terschellingia和Diplolaimella)均具有细长的体型和丝状尾部,这意味着其具有较灵活的移动能力,能够在泥质和较粉砂质的沉积物表面和内部穿行,与孔隙较小的沉积物环境相符合[44];同时,细颗粒沉积物通常比粗颗粒沉积物具有较低的氧气含量,海洋线虫纤细的身体也更有利于通过扩散获取氧气[45-46]。特别对于金海湾海榄雌林而言,其作为河流入海口且为旅游区,受人类活动影响较大,可能使线虫处于一种高频干扰或胁迫状态。该海榄雌林的最优势属(Diplolaimella,40.81%)生活史策略为机会主义定殖者(Opportanistic colonizer)c-p 2型,其生活周期短,为适应需要快速繁殖的不稳定环境,所以线虫通常保持较小的体型[21]。因此,尽管整体上体长与粉砂黏土含量及有机质含量正相关,但局部环境的干扰也会造成适当影响,最终塑造出不同生境中线虫体长的分布。
分选系数反映水动力条件对沉积物的影响程度[47],其值越大表明沉积物的分选越差[48]。本研究中,分选系数不仅与最大体宽显著相关,同时也是体长-体宽比值的显著影响因子。分选好的沉积物中多分布体型较大的捕食性线虫[47],分选较差的沉积环境中多分布体型较小的非选择性沉积食性线虫,其摄食行为使它们能够在多种环境中生存[49]。本研究中,三处红树林的海洋线虫均以非选择性沉积食性者为主。其中,金海湾海榄雌林的分选系数最高,分选最差,海洋线虫最大体宽和体长-体宽比值均为最小,这与Martins等[49]的研究结果一致。竹林与金海湾海榄雌林相比,其分选系数无显著差异,海洋线虫的体长-体宽比值也较为一致,但是竹林海榄雌林海洋线虫却表现出最大的体宽,这与竹林海榄雌林海洋线虫的体型参数受单宁含量的影响表现出的结果相符,体现了多环境因子对功能性状的复合影响。
本研究采样点为同一树种的红树林,但水解单宁含量却存在极显著差异。在颗粒较粗的竹林海榄雌林沉积物中,单宁含量极低,而在颗粒较细的垌尾和金海湾海榄雌林沉积物中,单宁含量均高于竹林且数值较接近,这与其所处沉积环境和采样时间节点存在差异相关。细沉积物不仅伴随高有机质含量,也伴随高单宁含量,同时本研究中单宁含量与有机质含量显著正相关。Adamczyk等[50]曾指出,单宁可与蛋白质、几丁质等有机氮化合物结合,形成溶解度低、分解缓慢的复合物,从而可能以有机形态保留在土壤中,成为土壤有机质的重要组成部分;Adamczyk等[51]也表明高浓度单宁会抑制分解酶(如纤维素酶、蛋白酶)活性,降低微生物对有机碳的分解,从而减少有机质损耗。除此之外,采样时的环境条件也可能造成影响:竹林海榄雌林采样时海水尚未完全退去,水体可能对沉积物中的单宁产生稀释作用;同时,海榄雌林所含单宁种类为水解单宁,稳定性较差、易水解为小分子酚酸等物质[52-53],在海水覆盖条件下可能加速其流失,从而导致该站点测得的水解单宁含量偏低。
4 结论(1) 本研究三处海榄雌林海洋线虫的群落结构存在显著空间分化,相比垌尾和金海湾,竹林海榄雌林沉积物中海洋线虫的丰度和多样性显著更高,其群落结构与后两者差异明显,而金海湾与垌尾海榄雌林的群落结构相似性较高。
(2) 海洋线虫功能性状也表现出明显空间差异。金海湾海榄雌林海洋线虫的体长、最大体宽、咽长和体长-体宽比值均为最小;竹林海榄雌林海洋线虫最大体宽和咽长最大;垌尾海榄雌林海洋线虫体长和体长-体宽比值最大。在摄食类型上,三处均以非选择性沉积食性者为主,但竹林海榄雌林中海洋线虫的刮食者和捕食者数量的比值高于其他两处。
(3) 沉积物粒度特征、有机质含量和单宁含量是导致海洋线虫群落结构与功能性状空间分异的显著环境因子:沉积物粒度特征通过改变其他沉积环境因素,间接作用于线虫体长和体长-体宽比值;有机质含量与线虫丰度和多样性均显著负相关;单宁含量通过直接毒性效应和间接调控食物资源,影响线虫物种组成和最大体宽。
| [1] |
张涛, 何芸, 尤淑撑, 等. 卫星遥感监测服务中国红树林生态系统保护与修复[J]. 卫星应用, 2023(11): 14-19. Zhang T, He Y, You S C, et al. Satellite remote sensing monitoring serves the protection and restoration of mangrove ecosystems in China[J]. Satellite Application, 2023(11): 14-19. (  0) |
| [2] |
Pinto T K, Austen M C V, Warwick R M, et al. Nematode diversity in different microhabitats in a mangrove region[J]. Marine Ecology, 2013, 34(3): 257-268. DOI:10.1111/maec.12011 ( 0) |
| [3] |
范航清, 王文卿. 中国红树林保育的若干重要问题[J]. 厦门大学学报(自然科学版), 2017, 56(3): 323-330. Fan H Q, Wang W Q. Some thematic issues for mangrove conservation in China[J]. Journal of Xiamen University (Natural Science), 2017, 56(3): 323-330. ( 0) |
| [4] |
张姗. 广西红树林保护历程回顾与展望[J]. 广西科学院学报, 2021, 37(3): 161-170. Zhang S. Review and prospect on the protection process of mangrove in Guangxi[J]. Journal of Guangxi Academy of Sciences, 2021, 37(3): 161-170. ( 0) |
| [5] |
范航清, 陆露, 阎冰. 广西红树林演化史与研究历程[J]. 广西科学, 2018, 25(4): 343-351. Fan H Q, Lu L, Yan B. Evolution history and research processes of Guangxi mangroves[J]. Guangxi Sciences, 2018, 25(4): 343-351. ( 0) |
| [6] |
邱广龙. 红树植物白骨壤繁殖生态研究与果实品质分析[D]. 南宁: 广西大学, 2005. Qiu G L. Reproductive Ecology Research and Fruit Quality Analysis of Mangrove Species Avicennia marina[D]. Nanning: Guangxi University, 2005. ( 0) |
| [7] |
孙明, 谢敏, 陈燕丽, 等. 基于通量塔的广西白骨壤群落虫害影响固碳监测[J]. 广西林业科学, 2024, 53(5): 585-593. Sun M, Xie M, Chen Y L, et al. Monitoring of carbon sequestration affected by pests in Avicennia marina community in Guangxi based on flux tower[J]. Guangxi Forestry Science, 2024, 53(5): 585-593. ( 0) |
| [8] |
孙明, 谢敏, 廖雪萍, 等. 广西典型红树植物-白骨壤总初级生产力遥感估算研究[J]. 气象研究与应用, 2024, 45(4): 95-101. Sun M, Xie M, Liao X P, et al. Study on remote sensing estimation of gross primary productivity of typical mangrove species-Avicennia marina in Guangxi[J]. Journal of Meteorological Research and Application, 2024, 45(4): 95-101. ( 0) |
| [9] |
黄灵玉, 胡宝清, 范航清. 白骨壤对关键环境因子的生态响应研究进展[J]. 广西科学院学报, 2014, 30(4): 257-262. Huang L Y, Hu B Q, Fan H Q. Ecological responses of Avicennia marina to key environmental factors: A review[J]. Journal of Guangxi Academy of Sciences, 2014, 30(4): 257-262. ( 0) |
| [10] |
Moens T, Braeckman U, Derycke S, et al. 3. Ecology of free-living marine nematodes[J]. Handbook of Zoology: Gastrotricha, Cycloneuralia and Gnathifera, 2013, 2: 109-152. ( 0) |
| [11] |
Zeppilli D, Sarrazin J, Leduc D, et al. Is the meiofauna a good indicator for climate change and anthropogenic impacts?[J]. Marine Biodiversity, 2015, 45(3): 505-535. DOI:10.1007/s12526-015-0359-z ( 0) |
| [12] |
杨幼晨, 张德梅, 慕芳红, 等. 海南省三亚市红树林湿地海洋线虫群落特征及其影响因子[J]. 海洋学报, 2024, 46(11): 91-105. Yang Y C, Zhang D M, Mu F H, et al. Characteristics and their influencing factors of marine nematode communities in mangrove wetlands of Sanya City, Hainan Province[J]. Haiyang Xuebao, 2024, 46(11): 91-105. ( 0) |
| [13] |
Schratzberger M, Warr K, Rogers S I. Functional diversity of nematode communities in the southwestern north sea[J]. Marine Environmental Research, 2007, 63(4): 368-389. DOI:10.1016/j.marenvres.2006.10.006 ( 0) |
| [14] |
Bremner J, Rogers S I, Frid C L J. Assessing functional diversity in marine benthic ecosystems: A comparison of approaches[J]. Marine Ecology Progress Series, 2003, 254: 11-25. DOI:10.3354/meps254011 ( 0) |
| [15] |
De Ley P, Blaxter M L. A new system for nematoda: Combining morphological characters with molecular trees, and translating clades into ranks and taxa[C]//Cook R, Hunt D. Proceedings of the Fourth International Congress of Nematology. Leiden: Brill Academic Publishers, 2002.
( 0) |
| [16] |
孙宏斌, 刘晓收. 青岛潮间带海洋线虫群落结构和功能性状及其对沉积环境因子的响应[J]. 生态学报, 2025, 45(20): 10164-10177. Sun H B, Liu X S. Community structure and functional traits of marine nematodes and their response to sediment environmental factors in the intertidal zones of Qingdao[J]. Acta Ecologica Sinica, 2025, 45(20): 10164-10177. ( 0) |
| [17] |
Sroczyńska K, Conde A, Chainho P, et al. How nematode morphometric attributes integrate with taxonomy-based measures along an estuarine gradient[J]. Ecological Indicators, 2021, 124: 107384. DOI:10.1016/j.ecolind.2021.107384 ( 0) |
| [18] |
Losi V, Moreno M, Gaozza L, et al. Nematode biomass and allometric attributes as indicators of environmental quality in a Mediterranean harbour(Ligurian Sea, Italy)[J]. Ecological Indicators, 2013, 30: 80-89. DOI:10.1016/j.ecolind.2013.01.034 ( 0) |
| [19] |
Grzelak K, Gluchowska M, Gregorczyk K, et al. Nematode biomass and morphometric attributes as biological indicators of local environmental conditions in arctic fjords[J]. Ecological Indicators, 2016, 69: 368-380. DOI:10.1016/j.ecolind.2016.04.036 ( 0) |
| [20] |
Tita G, Vincx M, Desrosiers G. Size spectra, body width and morphotypes of intertidal nematodes: An ecological interpretation[J]. Journal of the Marine Biological Association of the United Kingdom, 1999, 79(6): 1007-1015. DOI:10.1017/S0025315499001241 ( 0) |
| [21] |
Yang Y, Chen Y, Mu F, et al. Substrate-driven body size variation in marine nematodes: A comparative study of mangrove sediments and leaf litter[J]. Marine Environmental Research, 2025, 212: 107596. DOI:10.1016/j.marenvres.2025.107596 ( 0) |
| [22] |
Wieser W. The beziehung zwischen mundhohlengestalt, emahrungsweise und vorkommen bei freilebenden marinen nematoden. Eine okologisch-morphologische studie[J]. Arkiv F r Zoologi, 1953, 4(5): 439-484. ( 0) |
| [23] |
Hernandez J P E, Pineda J E M, Núñez D A S. Migration of deltaic and open water mangrove forests in response to environmental factors[J]. Frontiers in Marine Science, 2025, 12: 1569857. DOI:10.3389/fmars.2025.1569857 ( 0) |
| [24] |
张云兰, 潘良浩, 苏治南, 等. 广西红树林生态旅游安全动态评价——以金海湾景区为例[J]. 广西科学院学报, 2024, 40(3): 277-287. Zhang Y L, Pan L H, Su Z N, et al. Dynamic evaluation of mangrove ecotourism safety in Guangxi: A case study of the Golden Bay Scenic Area[J]. Journal of Guangxi Academy of Sciences, 2024, 40(3): 277-287. ( 0) |
| [25] |
王荣. 荧光法测定浮游植物色素计算公式的修正[J]. 海洋科学, 1986, 10(3): 1-5. Wang R. Correction of the formula to convert fluorescence measurement to pheophorbide a concentration in acidification method[J]. Marine Sciences, 1986, 10(3): 1-5. ( 0) |
| [26] |
刘昌岭, 朱志刚, 贺行良, 等. 重铬酸钾氧化-硫酸亚铁滴定法快速测定海洋沉积物中有机碳[J]. 岩矿测试, 2007, 26(3): 205-208. Liu C L, Zhu Z G, He X L, et al. Rapid determination of organic carbon in marine sediment samples by potassium dichromate oxidation ferrous sulphate titrimetry[J]. Rock and Mineral Analysis, 2007, 26(3): 205-208. ( 0) |
| [27] |
周红, Uddin S M, 黄梦娇, 等. 南海北部陆架和陆坡区小型底栖动物群落的比较研究[J]. 海洋与湖沼, 2020, 51(3): 555-563. Zhou H, Uddin S M, Huang M J, et al. Comparison in meiofaunal communities between shelf and slope of the northern South China Sea[J]. Oceanologia et Limnologia Sinica, 2020, 51(3): 555-563. ( 0) |
| [28] |
国家海洋局. GB/T 12763.8-2007海洋监测规范第8部分: 海洋地质地球物理调查[S]. 北京: 中国标准出版社, 2007. State Oceanic Administration. GB/T 12763.8-2007 The Specification for Oceanographic Survey-Part 8: Marine Geology and Geophysics Survey[S]. Beijing: China Standard Press, 2007. ( 0) |
| [29] |
Boggs S. Principles of Sedimentology and Stratigraphy[M]. Harlow: Pearson New International, 2014.
( 0) |
| [30] |
Mohammad D A, Al-Farga A, Sami M. Experimental study of organic enrichment on meiofaunal diversity[J]. Scientific Reports, 2024, 14(1): 10681. DOI:10.1038/s41598-024-60690-7 ( 0) |
| [31] |
Zhou H. Effects of leaf litter addition on meiofaunal colonization of azoic sediments in a subtropical mangrove in Hong Kong[J]. Journal of Experimental Marine Biology and Ecology, 2001, 256(1): 99-121. DOI:10.1016/S0022-0981(00)00310-5 ( 0) |
| [32] |
Ghosh M, Mandal S. Does vertical distribution of meiobenthic community structure differ among various mangrove habitats of sundarban estuarine system?[J]. Regional Studies in Marine Science, 2019, 31: 100778. DOI:10.1016/j.rsma.2019.100778 ( 0) |
| [33] |
Soetaert K, Franco M, Lampadariou N, et al. Factors affecting nematode biomass, length and width from the shelf to the deep sea[J]. Marine Ecology Progress Series, 2009, 392: 123-132. DOI:10.3354/meps08202 ( 0) |
| [34] |
Moens T, Vincx M. Observations on the feeding ecology of estuarine nematodes[J]. Journal of the Marine Biological Association of the United Kingdom, 1997, 77(1): 211-227. DOI:10.1017/S0025315400033889 ( 0) |
| [35] |
张德梅, 慕芳红, 张烨, 等. 不同植被类型红树林沉积物海洋线虫群落的比较——以东寨港红树林自然保护区为例[J]. 中国海洋大学学报(自然科学版), 2024, 54(7): 30-41. Zhang D M, Mu F H, Zhang Y, et al. Comparison of marine nematode communities in mangrove sediments from different vegetation forms: A case study in the Dongzhaigang Mangrove Nature Reserve[J]. Periodical of Ocean University of China, 2024, 54(7): 30-41. DOI:10.16441/j.cnki.hdxb.20220265 ( 0) |
| [36] |
Zhang D, Yang Y, Zhang Y, et al. How different are the nematode communities between the two main habitats of a mangrove forest? Insights from a subtropical mangrove forest[J]. Regional Studies in Marine Science, 2025, 89: 104300. DOI:10.1016/j.rsma.2025.104300 ( 0) |
| [37] |
Katiki L M, Ferreira J F S, Gonzalez J M, et al. Anthelmintic effect of plant extracts containing condensed and hydrolyzable tannins on caenorhabditis elegans, and their antioxidant capacity[J]. Veterinary Parasitology, 2013, 192(1-3): 218-227. DOI:10.1016/j.vetpar.2012.09.030 ( 0) |
| [38] |
Alongi D M. The influence of mangrove-derived tannins on intertidal meiobenthos in tropical estuaries[J]. Oecologia, 1987, 71(4): 537-540. DOI:10.1007/BF00379293 ( 0) |
| [39] |
Lang T, Hussain M, Li M, et al. Unlocking the structure-activity relationship of mangrove condensed and hydrolysable tannins: Unveiling their potential ecological significance in antioxidant and antibacterial functions[J]. International Journal of Biological Macromolecules, 2025, 307: 141918. DOI:10.1016/j.ijbiomac.2025.141918 ( 0) |
| [40] |
Moens T, Verbeeck L, Maeyer A de, et al. Selective attraction of marine bacterivorous nematodes to their bacterial food[J]. Marine Ecology Progress Series, 1999, 176: 165-178. DOI:10.3354/meps176165 ( 0) |
| [41] |
Alkemade R, Wielemaker A, Herman P M J, et al. Population dynamics of Diplolaimelloides bruciei, a nematode associated with the salt marsh plant Spartina anglica[J]. Marine Ecology Progress Series, 1994, 105: 277-284. DOI:10.3354/meps105277 ( 0) |
| [42] |
Xie L, Ma Z, Yang G, et al. Study on the inhibition mechanism of eucalyptus tannins against Microcystis aeruginosa[J]. Ecotoxicology and Environmental Safety, 2023, 249: 114452. DOI:10.1016/j.ecoenv.2022.114452 ( 0) |
| [43] |
Geraert E. On growth and form in nematodes: Ⅱ. Oesophagus and body width in dorylaimida[J]. Nematologica, 1978, 24: 347-360. DOI:10.1163/187529278X00470 ( 0) |
| [44] |
郭嘉宇, 何蕾, 刘晓收, 等. 渤海自由生活海洋线虫体型特征及生物量谱[J]. 中国海洋大学学报(自然科学版), 2022, 52(10): 86-97. Guo J Y, He L, Liu X S, et al. Body shape features and biomass size spectra of free living marine nematodes in the Bohai Sea[J]. Periodical of Ocean University of China, 2022, 52(10): 86-97. DOI:10.16441/j.cnki.hdxb.20210305 ( 0) |
| [45] |
Fleeger J W, Grippo M A, Pastorick S T. What is the relative importance of sediment granulometry and vertical gradients to nematode morphometrics?[J]. Marine Biology Research, 2011, 7(2): 122-134. DOI:10.1080/17451000.2010.492221 ( 0) |
| [46] |
Soetaert K, Muthumbi A, Heip C. Size and shape of ocean margin nematodes: Morphological diversity and depth-related patterns[J]. Marine Ecology Progress Series, 2002, 242: 179-193. DOI:10.3354/meps242179 ( 0) |
| [47] |
Santos G H C, Cardoso R S, Maria T F. Bioindicators or sediment relationships: Evaluating ecological responses from sandy beach nematodes[J]. Estuarine, Coastal and Shelf Science, 2019, 224: 217-227. DOI:10.1016/j.ecss.2019.04.035 ( 0) |
| [48] |
Urban-Malinga B, Kotwicki L, Gheskiere TomL A, et al. Composition and distribution of meiofauna, including nematode genera, in two contrasting arctic beaches[J]. Polar Biology, 2004, 27(8): 447-457. ( 0) |
| [49] |
Martins M de O, Almeida T C M de, Domenico M D. Vertical distribution of meiofauna on reflective sandy beaches[J]. Brazilian Journal of Oceanography, 2015, 63(4): 469-480. DOI:10.1590/S1679-87592015095606304 ( 0) |
| [50] |
Adamczyk B. Tannins and climate change: Are tannins able to stabilize carbon in the soil?[J]. Journal of Agricultural and Food Chemistry, 2024, 72: 8928-8932. ( 0) |
| [51] |
Adamczyk B, Karonen M, Adamczyk S, et al. Tannins can slow-down but also speed-up soil enzymatic activity in boreal forest[J]. Soil Biology & Biochemistry, 2017, 107: 60-67. ( 0) |
| [52] |
Lang T, Yee Tam N F, Hussain M, et al. Dynamics of heavy metals during the development and decomposition of leaves of Avicennia marina and Kandelia obovata in a subtropical mangrove swamp[J]. Science of the Total Environment, 2023, 855: 158700. DOI:10.1016/j.scitotenv.2022.158700 ( 0) |
| [53] |
Lang T, Ke X, Wei J, et al. Dynamics of tannin variations in mangrove leaf litter decomposition and their effects on environmental nitrogen and microbial activity[J]. Science of the Total Environment, 2024, 908: 168150. DOI:10.1016/j.scitotenv.2023.168150 ( 0) |