 2026, Vol. 56


2. 青岛市近海生态修复与安全保障重点实验室, 山东 青岛 266104;
3. 近岸海藻场建设山东省工程研究中心, 山东 青岛 266104;
4. 山东省海岸带环境过程与生态修复重点实验室(筹), 山东 烟台 264003;
5. 山东省智慧海洋牧场重点实验室(筹), 山东 青岛 266104;
6. 中国海洋大学海德学院, 山东 青岛 266100
大型藻类表面和周围环境中蕴藏着丰富的微生物群落,两者之间的互利共生关系构成了水生生态系统能量流动与物质循环的核心驱动机制之一。大型藻类可以通过光合作用向水体中释放氧气并分泌有机碳源,为附生菌提供生存基质与能量基础[1-2];而附生菌则通过固氮、溶磷和合成生长因子等代谢活动,反哺宿主藻类的营养需求,并协同增强其抗逆能力[3-5]。这种双向物质交换与信号互作不仅显著提升了大型藻类的初级生产力,还通过共代谢途径参与碳、氮、硫等元素的生物地球化学循环,对维持水体生态平衡和碳汇功能具有重要作用。
对于具有雌雄异株的大型藻类而言,其雌、雄生殖托在萌发、生长和发育过程中形态特征差异显著。这种性别差异可能影响藻体表面的物理环境和化学特性,进而影响附生菌的组成和代谢产物的种类和含量。具体而言,雌、雄生殖托的形态差异(如体积、厚度和表面结构等)可能为附生菌提供不同的附着位点和生长条件[6]。例如,马尾藻(Sargassum)的雌性生殖托通常具有较厚的黏液层,主要由褐藻酸和多糖构成,形成的亲水性基质可为固氮菌和褐藻酸降解菌(Paenibacillus agaridevorans)提供稳定的附着位点。而雄性生殖托表面密布分泌孔道和微绒毛,形成高氧扩散率的粗糙表面,适宜好氧菌和硫氧化菌的定殖[7]。此外,不同性别的生殖托在生长速率和代谢活动上存在差异,可能导致其分泌的营养物质和化学信号不同,从而进一步影响附生菌组成和代谢产物的种类与含量[7-8]。例如,成熟期鼠尾藻(Sargassum thunbergii)雌、雄藻株的生殖组织在体积、形态、表面光滑度及内部细胞构造上均存在显著分化,这不仅导致二者生殖功能各异,还可能使得其表面附生的细菌群落也呈现出特异性差异[8-9]。因此,大型海藻种类、生长部位及生活史的不同均会影响附生菌群落结构及代谢功能,探究大型藻类附生菌群落多样性及功能调控对深入了解大型藻类的生态作用具有重要意义。
羊栖菜(Sargassum fusiforme)作为一种暖温带性的大型经济海藻,隶属马尾藻科(Sargassaceae)马尾藻属(Sargassum),在中国沿海地区分布广泛[10]。羊栖菜属于雌雄异株植物,繁殖时雌、雄藻体皆由藻体的叶腋处生出生殖托,性成熟时由生殖托上形成的生殖窝孔中排出卵囊或精囊,黏附于生殖托周围进行受精,然后脱离生殖托附着在附着基上形成新的孢子体[11-12]。近年来,随着对海藻资源开发利用的深入,有关羊栖菜的研究受到越来越多的关注,尤其是羊栖菜通过与附生菌的互利共生,在参与碳氮硫循环、提供栖息地、维持潮间带生态平衡、改善水质及增强海洋生态系统稳定性等生态修复方面发挥着重要作用。为进一步探究雌性异株的大型藻类在藻际微生物群落方面的性别差异特征,本研究通过16S rRNA测序技术对羊栖菜藻体生殖器官附生菌进行了群落结构及功能分析,旨在为深入理解大型藻类的生态功能提供理论依据。
1 材料与方法 1.1 样品采集与处理本研究于2024年7月,在崂山湾小管岛东侧海域岩质潮间带采集羊栖菜雌、雄藻体各6株,采集雌性生殖托样品(编号: SZ1、SZ2、SZ3)、雄性生殖托样品(编号: M_SZ1、M_SZ2、M_SZ3)、雌性气囊样品(编号: QN1、QN2、QN3)、雄性气囊样品(编号M_QN1、M_QN2、M_QN3)各3个。采集野生样品后,立即运送至山东省海洋科学研究院近海藻类种质实验室进行后续处理。首先用无菌海水对采集样品进行简单冲洗,然后从羊栖菜藻体中摘出约25 g生殖托和气囊转移至250 mL锥形瓶中,加入70 mL 0.01 mol·L-1磷酸盐缓冲液(pH=7.4),使用透气膜封住瓶口后,在200 r·min-1的摇床上于室温振荡0.5 h。将振荡后获得的由藻体表面分离出的附生菌悬液经过500目筛绢过滤,去掉悬液中混合的泥沙杂质。在无菌环境中使用真空抽滤装置过滤细菌,并用孔径0.22 μm的滤膜收集细菌,随后立即将滤膜储存在-80 ℃超低温冰箱中,用于后续DNA提取。
1.2 DNA提取及高通量测序对于预处理完成的样品,采用OMEGA Soil DNA Kit(Omega Bio-Tek, Norcross, GA, USA)试剂盒进行DNA抽提。抽提后的DNA通过0.8%琼脂糖凝胶电泳判断其分子质量,利用Nanodrop(Thermo Scientific)对DNA进行定量。选择细菌16S rRNA基因高度可变的V5—V7区进行测序,PCR扩增引物为799F(5’-AACMGGATTAGATACCCKG-3’)和1193R(5’-ACGTCATCCCCACCTTCC-3’)[13]。PCR反应体系(25 μL)包括:2×Taq PCR MasterMix 12.5 μL,上、下游引物(10 μmol·L-1)各1 μL,模板DNA 10 ng,用于补齐至25 μL的ddH2O。扩增条件如下:98 ℃预变性5 min;98 ℃变性30 s,53 ℃退火30 s,72 ℃延伸45 s,共25循环;72 ℃终延伸5 min。取扩增产物进行2%琼脂糖凝胶电泳,切取目的片段使用Axygen凝胶回收试剂盒进行回收。将纯化产物按等摩尔浓度混合,构建PE300文库,采用Illumina NovaSeq 6000平台进行双端测序(供应商:上海派森诺生物科技股份有限公司)。
1.3 数据处理及分析原始序列数据使用demux插件进行解码处理,cutadapt插件进行引物切除,然后使用DADA2软件对序列进行质量过滤、去噪、拼接和嵌合体去除等数据处理。对上述获得的序列按100%的序列相似度进行归并,生成特征性序列扩增子序列变体(Amplicon sequence variant,ASV)以及丰度数据表格[14]。通过采用Greengenes数据库,将ASV特征序列与数据库中的参考序列相比对,获取每个ASV所对应的分类学信息。将丰度值低于全体样本测序总量0.001%的ASV去除,并将去除了稀有ASV(每个样本内相对丰度<1%的ASV)的丰度矩阵用于后续分析[15]。
为比较不同样本的多样性,以全部样本中序列量最低样本序列量的95%对ASV丰度矩阵进行随机抽平,以校正测序深度引起的样本间多样性差异。将样本分为雌性生殖托组(SZ)、雄性生殖托组(M_SZ)、雌性气囊组(QN)和雄性气囊组(M_QN)。从每组中随机抽取一定数量的序列,预测各组在一系列给定的测序深度下可能包含的物种总数及每个物种的相对丰度,绘制稀疏曲线,探究样本α多样性随抽平深度的变化趋势[15]。为比较雌、雄藻体生殖托和气囊附生菌微生物群落的α多样性,使用QIME2软件计算每组的α多样性指数,以Chao1指数表征丰富度[16]、以Good’s coverage指数表征覆盖度并以Shannon和Simpson指数表征多样性[17-19]。将雌、雄生殖托附生菌和雌、雄气囊附生菌的ASV按其丰度从大到小沿横坐标依次排列,并将经log2转化后的相对丰度值作为纵坐标,在R软件中编写脚本绘制各分组的丰度等级曲线,以此直观地反映群落中高丰度和稀有ASV的数量。采用ASV在所有样本中的丰度数据,以每个分组作为一个集合,按样品的分组情况统计每个集合中的ASV,并计算各个集合之间的关系,绘制Venn图。
通过R软件中的vegan包,基于Bray-Curtis距离进行β多样性分析,以探究样本间的微生物群落结构变化,并通过限制性主坐标分析(Constrained principal coordinates analysis,CPCoA)的方法进行可视化,表征羊栖菜生殖器官性别差异对附生菌的影响[20]。进一步利用Kruskal-Wallis秩和检验检测所有的特征物种,通过检测不同分组间的物种丰度差异获得显著性差异物种,再利用Wilcoxon秩和检验,以验证上述显著性差异物种包含的各种亚种是否在同一分类级别上表现出一致的变化趋势,最后使用线性判别分析(Linear discriminant analysis,LDA)得到最终的组间差异物种[21-22]。
微生物群落的代谢功能由PICRUSt2软件在京都基因与基因组百科全书(Kyoto Encyclopedia of Genes and Genomes, KEGG)数据库上进行预测。基于预测结果,对功能单元进行功能层面上的主坐标分析(Principal coordinates analysis,PCoA),同时根据校正后的P值(Adjusted P value)和差异表达倍数(log2 (Fold change))分别筛选雌、雄生殖托和雌、雄气囊附生菌的差异代谢通路[23]。
2 结果 2.1 高通量测序结果利用16S rRNA测序技术,对12个样本进行测序,共获得原始序列839 520条,通过DADA2软件对得到的原始序列进行质控、去噪、拼接、去嵌合体后,获得高质量序列(非嵌合序列)437 848条,最后去除singleton(序列总数仅为1的ASV)后,获得序列436 805条(见表 1)。不同性别器官附生菌序列量也存在一定差异。雌性生殖托附生菌的原始序列量为64 849~70 141条,而雄性生殖托附生菌序列量(66 462~81 545条)显著高于雌性,其中样本M_SZ1序列量最高。在有效序列量和高质量序列量方面,雄性器官附生菌整体高于雌性器官附生菌,如雄性气囊附生菌的高质量序列量平均为38 060条,而雌性气囊附生菌为34 714条。此外,拼接后的序列量及去除singleton后的保留率大于99%,表明数据质量可靠。
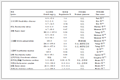
|
表 1 样本序列量统计表 Table 1 Statistical table of sample sequence quantity |
基于Chao1指数构建的稀释曲线显示(见图 1),当测序量达到30 000条时,各分组的物种累积曲线均进入平台期,表明本研究的测序深度已充分捕获样本附生菌多样性。图 2为雌、雄生殖托附生菌和雌、雄气囊附生菌四个组间的丰度等级曲线,折线的平缓程度反映了群落组成的均匀度。可以看出,雌性生殖托附生菌和雌性气囊附生菌相较雄性组更为平缓,这表明雌性生殖托附生菌和雌性气囊附生菌中各ASV间的丰度差异较小,群落组成的均匀度更高。

|
( 箱体上下端线为上下四分位数,箱内中位线表示中位数,上下边缘分别代表最大值与最小值;曲线平缓程度反映测序深度对样本多样性观测结果的影响,曲线越平缓,说明测序数据足以表征样本的物种多样性,进一步提升测序深度也难以检出大量新的 ASVs。The upper and lower boundaries of the box represent the upper and lower quartiles, the line within the box denotes the median, and the upper and lower whiskers indicate the maximum and minimum values, respectively. The flatness of the curves reflects the effect of sequencing depth on the observed sample diversity. A flatter curve indicates that the sequencing data are sufficient to characterize the species diversity of the samples, and that further increasing sequencing depth can hardly detect a large number of novel ASVs. ) 图 1 羊栖菜雌、雄生殖托和气囊附生菌基于Chao1指数的稀释曲线 Fig. 1 Rarefaction curves based on the Chao1 index for epiphytic bacteria on female and male receptacles and air vesicles of Sargassum fusiforme |

|
图 2 羊栖菜雌、雄生殖托附生菌和雌、雄气囊附生菌丰度等级曲线 Fig. 2 Rank-abundance curves of epiphytic bacteria on male and female reproductive receptacles and gas vesicles of Sargassum fusiforme |
Venn图显示,雌性生殖托附生菌特有ASV共1 774个,占其全部ASV的75.33%;而雄性生殖托附生菌特有ASV共1 532个,占其全部ASV的69.23%;雌性气囊附生菌和雄性气囊附生菌特有ASV较为相近,分别为1 690和1 609个,占其全部ASV的75.78%和70.94%。从两性共有ASV来看,雌性生殖托附生菌和雄性生殖托附生菌有ASV共314个,分别占雌性生殖托附生菌和雄性生殖托附生菌ASV的13.33%和14.19%;雌性气囊附生菌和雄性气囊附生菌有ASV共271个,分别占雌性气囊附生菌和雄性气囊附生菌ASV的12.15%和11.95%(见图 3)。

|
图 3 羊栖菜雌、雄生殖托附生菌和雌、雄气囊附生菌Venn图 Fig. 3 Venn diagram of epiphytic bacteria on male and female reproductive receptacles and gas vesicles of Sargassum fusiforme |
根据附生菌群落多样性分析结果,羊栖菜生殖托附生菌的群落结构和多样性呈现显著的性别差异特征。α多样性分析显示,雌、雄生殖托附生菌的Good’s Coverage指数均达0.97以上,这表明测序数据已足够覆盖样本中的绝大多数微生物种类(见图 4)。从Simpson指数和Shannon指数来看,雌性生殖托附生菌均高于雄性生殖托附生菌,尤其是雌性生殖托附生菌与雄性生殖托附生菌在Simpson指数上呈现显著差异(p=0.05),这表明雌性生殖托附生菌相较雄性生殖托附生菌具有更高的丰富度和均匀度,群落多样性更高。Chao1指数通常用来表征样品中微生物群落的丰度信息,其值越大,代表物种总数越多,本研究中雌性生殖托附生菌Chao1指数高于雄性生殖托附生菌,表明雌性生殖托附生菌在一定程度上具有更高的物种丰富度。在气囊组织中,雌性气囊附生菌各项α多样性指数与雄性气囊附生菌之间虽未呈现显著的差异(p>0.05),但从α多样性数值来看,雌性气囊附生菌在丰富度和多样性上高于雄性气囊附生菌。

|
( (a)生殖托 Reproductive receptacles;(b)气囊 Gas vesicles.) 图 4 羊栖菜雌、雄生殖托附生菌和雌、雄气囊附生菌α多样性指数的组间差异 Fig. 4 4 Differences in α diversity indices of epiphytic bacteria between groups of male and female reproductive receptacles and gas vesicles of Sargassum fusiforme |
基于Bray-Curtis指数的限制性主坐标分析(CPCoA)对羊栖菜不同性别与不同器官中的微生物群落进行样本间的差异分析即β的多样性分析,结果如图 5所示,各分组内的样本聚类在一起,但不同组别之间的样本存在分离,CPCoA1和CPCoA2分别解释了46.89%和30.25%的微生物群落差异,最大可解析整体38.2%的变异,并且组间至少存在一个两组间的显著差异(p=0.001),这表明不同性别与不同器官中的微生物群落结构差异显著,暗示着羊栖菜雌、雄生殖器官附生菌群落多样性及群落构建机制存在显著分化,或与其性别特异性代谢调控网络的差异密切相关。

|
图 5 羊栖菜雌、雄生殖托和雌、雄气囊附生菌CPCoA分析 Fig. 5 CPCoA analysis of epiphytic bacteria on male and female reproductive receptacles and gas vesicles of Sargassum fusiforme |
为深入探究羊栖菜藻体雌、雄生殖器官附生菌在群落组成上的差异,本研究基于门水平和属水平对附生菌展开进一步分析(见图 6)。门水平分析结果显示,所有分组中变形菌门(Proteobacteria)、浮霉菌门(Planctomycetota)是主要构成菌门。此外,蛭弧菌门(Bdellovibrionota)、厚壁菌门(Firmicutes)、脱硫杆菌门(Desulfobacterota)、放线菌门(Actinobacteriota)、硝化螺旋菌门(Nitrospirota)、黏球菌门(Myxococcota)、达达菌门(Dadabacteria)和拟杆菌门(Bacteroidota)等菌门在各分组中也有被检测到。不同组别之间各菌门的相对丰度存在一定差异,尤其是雌性生殖托附生菌和雌性气囊附生菌中变形菌门(Proteobacteria)的相对丰度均分别低于雄性生殖托附生菌和雄性气囊附生菌,而浮霉菌门(Planctomycetota)的相对丰度变化趋势则与之相反。

|
( (a)门水平 Phylum level;(b)属水平 Genuslevel.) 图 6 羊栖菜雌、雄生殖托附生菌和雌、雄气囊附生菌的群落组成 Fig. 6 Composition of epiphytic bacterial communities on male and female reproductive receptacles and gas vesicles of Sargassum fusiforme |
从属水平来看,羊栖菜雌、雄生殖器官附生菌中相对丰度均较高的菌属包括海杆菌属(Hellea)、赤杆菌属(Erythrobacter)、颗粒球菌属(Granulosicoccus)、海单胞菌属(Litorimonas)、弧菌属(Vibrio)、芽殖小梨形菌属(Blastopirellula)、亚硫酸盐杆菌属(Sulfitobacter)、海科贝特菌属(Cobetia)、交替红杆菌属(Altererythrobacter)和十八杆菌属(Octadecabacter)等多种菌属。不同性别和器官来源样本间的优势菌属在分布和相对丰度上均存在明显不同。雌性生殖托附生菌中海杆菌属(Hellea)、弧菌属(Vibrio)、芽殖小梨形菌属(Blastopirellula)、亚硫酸盐杆菌属(Sulfitobacter)等菌属的相对丰度高于雄性生殖托附生菌,而雄性生殖托附生菌中颗粒球菌属(Granulosicoccus)和海单胞菌属(Litorimonas)的相对丰度则较高。雌、雄气囊附生菌中群落组成性别差异与雌、雄生殖托附生菌基本相似,但芽殖小梨形菌属(Blastopirellula)和海科贝特菌属(Cobetia)的相对丰度在雌、雄气囊附生菌中显著高于同性别的生殖托附生菌。
2.4 组间差异物种分析为进一步剖析羊栖菜藻体雌、雄生殖器官附生菌的差异特征,本研究采用线性判别分析效应量(Linear discriminant analysis effect size,LEfSe)分析方法,设定LDA阈值为2,Kruskal-Wallis检验p值小于0.05,对不同分组进行各分类单元组间物种差异分析,具体物种差异结果如图 7所示。在雌、雄生殖托附生菌中,检测出多个具有显著差异的物种,其中中γ变形菌纲下的肠杆菌目(Enterobacterales)、弧菌科(Vibrionaceae)、砂胞菌目(Arenicellales)和杆状盐单胞菌科(Halomonadaceae)等均显著富集于雌性生殖托附生菌,而颗粒球菌纲(Granulosicoccales)、海单胞菌属(Litorimonas)、Magnetospiraceae、Parvibaculaceae、Thioalkalispiraceae、红螺菌目(Ectothiorhodospirales)和硫碱螺旋菌属(Sulfurivermis)显著富集于雄性生殖托附生菌。在气囊组织中,性别间差异物种的分布趋势较弱,但雌性气囊附生菌中仍观察到海岸杆菌属(Litoreibacter)、科迪单胞菌目(Kordiimonadales)和玫瑰变色菌属(Roseovarius)的富集,而雄性气囊附生菌中海单胞菌属(Litorimonas)、Yoonia、Lentilitoribacter、Nereida、Parvibaculaceae和北极海草单胞菌属(Algimonas)的相对丰度显著高于雌性气囊附生菌。以上LEfSe分析结果表明,羊栖菜藻体生殖托附生菌和气囊附生菌在不同性别间均存在差异显著的物种,这些差异物种可能在羊栖菜的生长、发育以及与环境的相互作用中发挥至关重要的作用,可为后续探究羊栖菜藻体附生菌与宿主性别相关的代谢调控机制提供关键线索。

|
( (a) 生殖托 Reproductive receptacles;(b) 气囊 Gas vesicles.LDA阈值为2。The threshold of LAD is 2.) 图 7 羊栖菜雌、雄生殖托附生菌和雌、雄气囊附生菌差异物种LEfSe分析 Fig. 7 LEfSe analysis of differential epiphytic bacterial species on male and female reproductive receptacles and gas vesicles of Sargassum fusiforme |
本研究进一步利用PICRUSt2软件将非冗余基因集序列与KEGG数据库进行基因同源性对比,通过对羊栖菜雌、雄生殖器官附生菌功能基因进行注释,分析预测细菌群落的代谢功能并找出雌、雄器官附生菌中具有显著差异的代谢通路。图 8(a)和图 8(b)中,横轴log2(Fold change)的正值分别表示雌性生殖托附生菌相对雄性生殖托附生菌、雌性气囊附生菌相对雄性气囊附生菌代谢通路的上调,负值则表示下调,同时以不同颜色展示代谢通路差异显著性程度。结果显示雌性生殖托附生菌的糖胺聚糖降解(ko00531)、其他聚糖降解(ko00511)、类固醇激素生物合成(ko00140)、二甲苯降解(ko00622)、类黄酮生物合成(ko00941)、硝基甲苯降解(ko00633)和幽门螺杆菌感染中的上皮细胞信号传导(ko05120)等代谢通路均被上调。相较而言,雄性生殖托附生菌的D型-精氨酸和D型-鸟氨酸代谢(ko00472)、类胡萝卜素生物合成(ko00906)、链霉素生物合成(ko00521)、青霉素和头孢菌素的生物合成(ko00311)和氧化磷酸化(ko00190)等代谢通路均被上调。在气囊组织中,雌性气囊附生菌相较雄性气囊附生菌显著上调的代谢通路包括β内酰胺抗药性(ko01501)、糖胺聚糖降解(ko00531)、鞘脂类代谢(ko00600)、类固醇激素生物合成(ko00140)、其他聚糖降解(ko00511)。

|
( (a) 雌性生殖托相对雄性生殖托上调的代谢通路;(b) 雌性气囊相对雄性气囊上调的代谢通路 (a)Metabolic pathways upregulated in female reproductive receptacles compared to male reproductive receptacles.(b)Metabolic pathways upregulated in female gas vesicles compared to male gas vesicles. ) 图 8 羊栖菜雌、雄生殖托附生菌和雌、雄气囊附生菌的代谢通路差异 Fig. 8 Difference of metabolic pathways for epiphytic bacteria on female and male reproductive receptacles and gas vesicles of Sargassum fusiforme |
羊栖菜作为雌雄异株的大型海藻,其性别差异对附生菌群落组成具有显著影响。本研究发现,羊栖菜雌、雄生殖托及气囊附生菌在门水平和属水平上均表现出显著的差异,这种差异可能是由宿主生殖结构的形态特征、表面微环境及代谢产物的差异共同作用导致的。例如,雌性生殖托附生菌α多样性显著高于雄性(见图 4),这一现象可能与雌性生殖托独特的形态特征和生理功能密切相关。雌性生殖托通常具有更发达的黏液分泌层和表皮结构(如细胞壁多糖和酚类物质的累积),这种微环境可能为附生菌提供了多样化的生态位,从而支持了更高的物种丰富度[7]。尤其是雌性生殖托附生菌中浮霉菌门(Planctomycetota)的显著富集与其表面较厚的多糖黏液层密切相关(见图 6(a)),此类黏液为降解复杂碳源的菌群提供了丰富的底物[24-25]。另一方面,雌性生殖托在卵细胞发育过程中分泌大量含氮代谢物(如游离氨基酸、尿素),这为具备氮同化能力的菌群(如浮霉菌门)创造了优势生态位[26-27]。浮霉菌门中厌氧氨氧化菌的活性可能通过将NH4·和NO2-转化为N2,来缓解雌性生殖托因高代谢活性导致的氨毒积累[28]。而雄性生殖托附生菌中变形菌门(Proteobacteria)的显著优势与其表面分泌孔道和高氧扩散率的微环境有关,这类环境更适于好氧或耐渗透压菌的定殖[29-30]。从属水平上看,雌性生殖托附生菌中海杆菌属(Marinobacter)和弧菌属(Vibrio)的富集通常与藻类多糖代谢和宿主防御相关,这暗示其可能参与雌性生殖托的碳源利用或病原体抑制过程[31]。相比之下,雄性生殖托附生菌中优势菌属如颗粒球菌属(Granulosicoccus)和海单胞菌属(Marinomonas)则与硫代谢及氧化应激响应密切相关,这反映了雄性个体在生殖期对活性氧(Reactive oxygen species,ROS)清除有更高的需求[32]。值得注意的是,尽管雌、雄气囊附生菌结构差异较弱,但在β多样性分析中仍呈现微弱的性别聚类趋势(见图 5)。这一结果与其功能的相对保守有关:气囊主要承担浮力和气体交换功能,如氧气浓度和光照暴露等表面微环境的变化可能限制了性别特异性代谢产物的释放,从而削弱了菌群的分异程度[33]。此外,羊栖菜生殖器官性别差异对菌群的影响还可能与环境因子存在交互作用。例如,雌性生殖器官在低温条件下对营养盐的吸收效率更高,会通过分泌含氮代谢产物来改变附生菌群的功能偏好,这一机制也解释了为何雌性生殖托附生菌中与氮代谢相关菌属(如海杆菌属、弧菌属等)的丰度显著高于雄性[34]。
3.2 羊栖菜生殖器官附生菌功能潜力与宿主代谢调控的性别关联羊栖菜生殖器官附生菌的代谢功能差异不仅反映了菌群对宿主微环境的适应性响应,更揭示了宿主的性别特异性代谢产物对菌群具有直接或间接调控功能,因此,通过代谢功能预测,能进一步揭示附生菌群与宿主间的代谢协同机制。本研究中雌性生殖托附生菌的糖胺聚糖降解和类固醇激素生物合成通路相较雄性生殖托附生菌显著上调(见图 8(a)),这一现象可能与雌性生殖托的卵子发育和细胞分化直接相关。已有研究指出,糖胺聚糖是褐藻生殖细胞壁的重要组成成分,因此雌性生殖托附生菌上调糖胺聚糖降解通路可以将宿主复杂的大分子多糖高效分解为可直接利用的单糖和寡糖,为卵子发育和合子附着提供即时的能量来源和结构前体[35];而类固醇激素(如褐藻甾醇)在雌性褐藻中具有调控生殖周期和性腺成熟的功能[36],附生菌通过上调类固醇激素生物合成通路,可能模拟或增强宿主内源激素信号,直接参与调控卵细胞的成熟、排放以及受精后合子的分化,充当调控生殖周期的“外部激素工厂”。相比之下,雄性生殖托附生菌类胡萝卜素生物合成和氧化磷酸化通路的富集可能与其高能量需求和抗逆特性相关。类胡萝卜素不仅是光合作用的辅助色素,还可作为抗氧化剂减少ROS对生殖细胞的损伤[37-38];雄性生殖托在产生和释放大量配子的过程中,本身消耗大量能量并产生氧化应激,附生菌大量合成类胡萝卜素以中和ROS,保护自身的细胞器免受氧化损伤,从而维持菌体结构的完整和功能的正常。同时,氧化磷酸化通路上调表明雄性生殖托附生菌处于一个能量需求更高的状态,代谢活动非常活跃,需要大量能量来维持生命活动[39]。在气囊组织中,雌性气囊附生菌相较雄性气囊附生菌显著上调的代谢通路包括β内酰胺抗药性、糖胺聚糖降解和鞘脂类代谢等(见图 8(b))。其中糖胺聚糖降解和其他聚糖降解代谢通路在雌、雄生殖托和气囊附生菌中均呈现出性别差异特征,这说明这部分代谢通路在羊栖菜不同性别个体的生理过程中具有重要且保守的作用。气囊作为羊栖菜重要的漂浮和气体交换器官,其附生菌代谢通路的差异可能也影响着气囊组织的生理功能。如雌性气囊附生菌β内酰胺抗药性相关代谢通路的上调表明,雌性气囊的微环境可能具有更强的生物竞争压力,其附生菌需要通过各种机制来争夺资源和空间,同时也可能暗示该环境中存在更多能产生β-内酰胺类物质的微生物。鞘脂类代谢通路的差异则与气囊细胞的膜结构和功能调节有关[40-41]。由此可见,羊栖菜附生菌的功能潜能与宿主性别特异性的代谢调控在一定程度上相互影响,宿主性别差异带来的微环境变化塑造了附生菌群落,而附生菌通过其代谢活动又反作用于宿主,参与宿主的营养代谢、防御反应等生理过程。这种复杂的相互作用机制仍有待进一步深入研究,以全面揭示大型藻类附生菌群与宿主之间的共生关系及其性别差异的内在机制。
4 结语本研究通过16S rRNA测序技术对羊栖菜藻体生殖器官附生菌进行了分析,成功揭示了羊栖菜雌、雄生殖托及气囊附生菌在群落结构上存在显著差异。在群落多样性上,雌性生殖托附生菌群α多样性高于雄性,表现出更高的丰富度和均匀度。β多样性分析表明,性别是驱动生殖托附生菌群结构分异的主要因子。在微生物群落组成方面,变形菌门(Proteobacteria)和浮霉菌门(Planctomycetota)是主要的细菌门类,其中雌性生殖托附生菌中浮霉菌门的相对丰度较高,而雄性生殖托附生菌中变形菌门占优势。此外,雌、雄气囊附生菌的结构呈现微弱的性别聚类趋势。在代谢功能预测上,羊栖菜雌性生殖托附生菌中糖胺聚糖降解和类固醇激素生物合成通路相对雄性显著上调,而雄性生殖托附生菌出现类胡萝卜素生物合成和氧化磷酸化通路的富集;雌性气囊附生菌相较雄性显著上调的代谢通路包括β内酰胺抗药性、糖胺聚糖降解和鞘脂类代谢等。推测这些代谢通路差异可能与雌、雄藻体表面理化特性和形态结构的差异均有关,宿主直接或间接调控附生菌群的选择性定殖与竞争,而附生菌又通过其代谢活动反作用于宿主,参与宿主的营养代谢、防御反应等生理过程。这一研究成果为深入理解羊栖菜与附生菌之间的共生关系及其性别差异机制提供了重要依据,但其中涉及的复杂相互作用机制仍有待进一步探索与研究。
| [1] |
Goecke F, Labes A, Wiese J, et al. Chemical interactions between marine macroalgae and bacteria[J]. Marine Ecology Progress Series, 2010, 409: 267-299. DOI:10.3354/meps08607 (  0) |
| [2] |
Gopalakrishnappa C, Li Z, Kuehn S. Environmental modulators of algae-bacteria interactions at scale[J]. Cell Systems, 2024, 15(9): 838-853. DOI:10.1016/j.cels.2024.08.002 ( 0) |
| [3] |
Nair S, Zhang Z, Li H, et al. Inherent tendency of Synechococcus and heterotrophic bacteria for mutualism on long-term coexistence despite environmental interference[J]. Science Advances, 2022, 8(39): eabf4792. DOI:10.1126/sciadv.abf4792 ( 0) |
| [4] |
Supty M S A, Jahan K, Lee J S, et al. Epiphytic bacterial community analysis of Ulva prolifera in Garorim and Muan Bays, Republic of Korea[J]. Microorganisms, 2024, 12(6): 1142. DOI:10.3390/microorganisms12061142 ( 0) |
| [5] |
Sun T, Yang Z, Chen J, et al. Effects of water loss stress under tidal effects on the epiphytic bacterial community of Sargassum thunbergii in the intertidal zone[J]. mSphere, 2022, 7(5): e0030722. DOI:10.1128/msphere.00307-22 ( 0) |
| [6] |
Lu D C, Wang F Q, Amann R I, et al. Epiphytic common core bacteria in the microbiomes of co-located green (Ulva), brown (Saccharina) and red (Grateloupia, Gelidium) macroalgae[J]. Microbiome, 2023, 11(1): 126. DOI:10.1186/s40168-023-01559-1 ( 0) |
| [7] |
Wang J, Li Y, Yang Z, et al. Sex plays a role in the construction of epiphytic bacterial communities on the algal bodies and receptacles of Sargassum thunbergii[J]. Frontiers in Microbiology, 2022, 13: 935222. DOI:10.3389/fmicb.2022.935222 ( 0) |
| [8] |
孙修涛, 王飞久, 张立敬, 等. 鼠尾藻生殖托和气囊的形态结构观察[J]. 海洋水产研究, 2007, 28(3): 125-131. Sun X T, Wang F J, Zhang L J, et al. Observations on morphology and structure of receptacles and pneumathode of Sargassum thunbergi[J]. Marine Fisheries Research, 2007, 28(3): 125-131. ( 0) |
| [9] |
袁世鹏. 鼠尾藻形态学及其对急性UV-B辐射增强的生理影响研究[D]. 青岛: 中国海洋大学, 2018. Yuan S P. Morphology of Sargassum thunbergii and Its Physiological Response to Acute UV-B Irradiation Expousure[D]. Qingdao: Ocean University of China, 2018. ( 0) |
| [10] |
周庆澔, 许曹鲁, 权伟. 不同条件下羊栖菜溶解有机碳(DOC)分泌特征[J]. 渔业研究, 2023, 45(3): 271-279. Zhou Q H, Xu C L, Quan W. Research on dissolved organic carbon(DOC) secretion of Sargassum fusiforme under different conditions[J]. Journal of Fisheries Research, 2023, 45(3): 271-279. ( 0) |
| [11] |
林立东, 尚天歌, 张甜甜, 等. 褐藻羊栖菜繁殖生物学特征和生活史流程的补充研究[J]. 水产学报, 2020, 44(4): 581-595. Lin L D, Shang T G, Zhang T T, et al. Supplementary study on reproductive biology and life cycle of Sargassum fusiforme (Phaeophyceae)[J]. Journal of Fisheries of China, 2020, 44(4): 581-595. ( 0) |
| [12] |
孙建璋, 方家仲, 朱植丰, 等. 浙南沿海羊栖菜繁殖生物学的初步研究[J]. 海洋渔业, 1996(3): 106-110. Sun J J, Fang J Z, Zhu Z F, et al. A preliminary study on the reproductive biology of Sargassum fusiforme in the southern coast of Zhejiang[J]. Marine Fisheries, 1996(3): 106-110. ( 0) |
| [13] |
Shi S, Kumar S, Young S, et al. Evaluation of 16S rRNA gene primer pairs for bacterial community profiling in an across soil and ryegrass plant study[J]. Journal of Sustainable Agriculture and Environment, 2023, 2(4): 500-512. DOI:10.1002/sae2.12075 ( 0) |
| [14] |
Callahan B J, McMurdie P J, Rosen M J, et al. DADA2:High-resolution sample inference from Illumina amplicon data[J]. Nature Methods, 2016, 13(7): 581-583. DOI:10.1038/nmeth.3869 ( 0) |
| [15] |
Kemp P F, Aller J Y. Bacterial diversity in aquatic and other environments: What 16S rDNA libraries can tell us[J]. FEMS Microbiology Ecology, 2004, 47(2): 161-77. DOI:10.1016/S0168-6496(03)00257-5 ( 0) |
| [16] |
Chao A. Nonparametric estimation of the number of classes in a population[J]. Scandinavian Journal of Statistics, 1984, 11(4): 265-270. ( 0) |
| [17] |
Good I J. The population frequencies of species and the estimation of population parameters[J]. Biometrika, 1953, 40(3-4): 237-264. DOI:10.1093/biomet/40.3-4.237 ( 0) |
| [18] |
Shannon C E. A mathematical theory of communication[J]. The Bell System Technical Journal, 1948, 27(3): 379-423. DOI:10.1002/j.1538-7305.1948.tb01338.x ( 0) |
| [19] |
Simpson E H. Measurement of diversity[J]. Nature, 1949, 163: 688-688. DOI:10.1038/163688a0 ( 0) |
| [20] |
Oksanen J, Blanchet F G, Kindt R, et al. Vegan community ecologypackage: Ordination methods, diversity analysis and other functions for community and vegetation ceologists. Version 2.3-1[EB/OL]. (2015-01-01)[2025-08-14]. https://www.researchgate.net/publication/304765285.
( 0) |
| [21] |
Whittaker R H. Evolution and measurement of species diversity[J]. Taxon, 1972, 21(2-3): 213-251. DOI:10.2307/1218190 ( 0) |
| [22] |
Segata N, Izard J, Waldron L, et al. Metagenomic biomarker discovery and explanation[J]. Genome Biology, 2011, 12(6): R60. DOI:10.1186/gb-2011-12-6-r60 ( 0) |
| [23] |
Langille M G I, Zaneveld J, Caporaso J G, et al. Predictive functional profiling of microbial communities using 16S rRNA marker gene sequences[J]. Nature Biotechnology, 2013, 31(9): 814-821. DOI:10.1038/nbt.2676 ( 0) |
| [24] |
Bengtsson M M, Øvreås L. Planctomycetes dominate biofilms on surfaces of the kelp Laminaria hyperborea[J]. BMC Microbiology, 2010, 10(1): 261. DOI:10.1186/1471-2180-10-261 ( 0) |
| [25] |
de Mesquita M M F, Crapez M A C, Teixeira V L, et al. Potential interactions bacteria-brown algae[J]. Journal of Applied Phycology, 2019, 31(2): 867-883. DOI:10.1007/s10811-018-1573-4 ( 0) |
| [26] |
Schiel D R, Foster M S. The Population biology of large brown seaweeds: Ecological consequences of multiphase life histories in dynamic coastal environments[J]. Annual Review of Ecology, Evolution, and Systematics, 2006, 37: 343-372. DOI:10.1146/annurev.ecolsys.37.091305.110251 ( 0) |
| [27] |
Sieburth J M. Studies on algal substances in the sea.Ⅲ. The production of extracellular organic matter by littoral marine algae[J]. Journal of Experimental Marine Biology and Ecology, 969, 3(3): 290-309. ( 0) |
| [28] |
Kartal B, Maalcke W J, de Almeida N M, et al. Molecular mechanism of anaerobic ammonium oxidation[J]. Nature, 2011, 479(7371): 127-130. DOI:10.1038/nature10453 ( 0) |
| [29] |
钟逸云, 郜晓峰, 邢浩, 等. 大型海藻对海水水族箱生态微宇宙结构及稳定性的影响[J]. 上海海洋大学学报, 2022, 31(2): 421-432. Zhong Y Y, Gao X F, Xing H, et al. Effects of macroalgae on the ecological microcosm's structure and stability of aquarium[J]. Journal of Shanghai Ocean University, 2022, 31(2): 421-432. ( 0) |
| [30] |
卢德臣. 威海近海四种野生海藻藻际微生物多样性及其功能潜力的研究[D]. 青岛: 中国海洋大学, 2022. Lu D C. Phycosphere Microbial Diversity and Functional Potential of Four Wild Macroalgae in the Coastal of Weihai[D]. Qingdao: Ocean University of China, 2022. ( 0) |
| [31] |
Singh R P, Reddy C R. Seaweed-microbial interactions: Key functions of seaweed-associated bacteria[J]. FEMS Microbiol Ecology, 2014, 88(2): 213-230. DOI:10.1111/1574-6941.12297 ( 0) |
| [32] |
Aires T, Serrão E A, Engelen A H. Host and environmental specificity in bacterial communities associated to two highly invasive marine species(Genus Asparagopsis)[J]. Frontiers in Microbiology, 2016, 7: 559. ( 0) |
| [33] |
吴祖立, 陈亮然, 王凯, 等. 枸杞岛铜藻气囊形态特征及其与环境因子的关系[J]. 水产学报, 2020, 44(5): 793-804. Wu Z L, Chen L R, Wang K, et al. Morphological characteristics of vesicle of Sargassum horneri and its relationship to environmental factors in Gouqi Island[J]. Journal of Fisheries of China, 2020, 44(5): 793-804. ( 0) |
| [34] |
滕峪, 汪鲁, 王占英, 等. 一株嗜碱兼性好氧反硝化菌Marinobacter sp. B3的分离鉴定及脱氮性能研究[J]. 海洋与湖沼, 2024, 55(2): 419-430. Teng Y, Wang L, Wang Z Y, et al. Isolation and identification of an alkalophilic facultative aerobic denitrification strain Marinobacter sp. B3 and its denitrification performance[J]. Oceanologia et Limnologia Sinica, 2024, 55(2): 419-430. ( 0) |
| [35] |
Deniaud-BouëtE, Kervarec N, Michel G, et al. Chemical and enzymatic fractionation of cell walls from Fucales: Insights into the structure of the extracellular matrix of brown algae[J]. Annals of Botany, 2014, 114(6): 1203-1216. DOI:10.1093/aob/mcu096 ( 0) |
| [36] |
Kumari P, Kumar M, Reddy C R K, et al. 3-Algal lipids, fatty acids and sterols[M]//Domínguez H. Functional Ingredients from Algae for Foods and Nutraceuticals. Cambridge: Woodhead Publishing, 2013: 87-134.
( 0) |
| [37] |
Ramel F, Birtic S, Cuiné S, et al. Chemical quenching of singlet oxygen by carotenoids in plants[J]. Plant Physiology, 2012, 158(3): 1267-1278. DOI:10.1104/pp.111.182394 ( 0) |
| [38] |
Mittler R, Vanderauwera S, Gollery M, et al. Reactive oxygen gene network of plants[J]. Trends in Plant Science, 2004, 9(10): 490-498. DOI:10.1016/j.tplants.2004.08.009 ( 0) |
| [39] |
Rotimi D E, Iyobhebhe M, Oluwayemi E T, et al. Energy metabolism and spermatogenesis[J]. Heliyon, 2024, 10(19): e38591. DOI:10.1016/j.heliyon.2024.e38591 ( 0) |
| [40] |
Guschina I A, Harwood J L. Lipids and lipid metabolism in eukaryotic algae[J]. Progress in Lipid Research, 2006, 45(2): 160-186. DOI:10.1016/j.plipres.2006.01.001 ( 0) |
| [41] |
Denoeud F, Godfroy O, Cruaud C, et al. Evolutionary genomics of the emergence of brown algae as key components of coastal ecosystems[J]. Cell, 2024, 187(24): 6943-6965. DOI:10.1016/j.cell.2024.10.049 ( 0) |
2. Qingdao Key Laboratory of Coastal Ecological Restoration and Security, Qingdao 266104, China;
3. Nearshore Seaweed Farm Construction Engineering Research Center of Shandong Province, Qingdao 266104, China;
4. Shandong Key Laboratory of Coastal Zone Environmental Processes and Ecological Security (under preparation), Yantai 264003, China;
5. Shandong Key Laboratory of Intelligent Marine Ranch (under preparation), Qingdao 266104, China;
6. Haide College, Ocean University of China, Qingdao 266100, China